Nota de campo
Dicksonia en el camino de Murringo, Río Verde de los Montes, Sonsón
Un helecho arborescente apenas documentado en el oriente de Antioquia crece en el camino de Murringo, al pie del páramo de Sonsón; hacia el norte, en dirección a La Honda, no lo he encontrado.
La revisión de Dicksonia del Neotrópico de Noben et al. (2018) redefinió la circunscripción de las especies de este género de helechos arborescentes y, con ella, cuáles crecen en Colombia. Para el país reconoce Dicksonia karsteniana (Klotzsch) T.Moore, con las variedades karsteniana y arachneosa; D. navarrensis Christ; D. lehnertiana, descrita en esa misma revisión y conocida del norte de Antioquia; y D. stuebelii, con un solo ejemplar colombiano, de 1945 (Noben et al., 2018: 847–855). El nombre D. sellowiana Hook., que todavía llevan la mayoría de los registros colombianos de Dicksonia en GBIF, queda restringido a la Mata Atlântica del sureste de Brasil y a las zonas vecinas de Paraguay, Argentina y Uruguay (Noben et al., 2018: 841, 854; GBIF.org, 2026a).
En Sonsón no encontré ningún ejemplar de herbario de Dicksonia, y en el resto del oriente de Antioquia, solo uno determinado como tal. No hay ninguno en GBIF, ni entre los ejemplares que citan Noben et al. (2018), ni en el Libro Rojo de los helechos arborescentes de Colombia (Cárdenas et al., 2019), ni en la base de datos del herbario HUA, cuyos 147 registros de Dicksonia, de 59 colecciones, no incluyen ninguno del oriente antioqueño (GBIF.org, 2026a; HUA, 2026). Ese único pliego lo encontré en el portal HVAA. Es una pinna recolectada en 1999 en Abejorral, vereda El Buey, finca El Recreo, a 2.500 m, en el interior de un bosque montañoso (A. Gil et al. 376, JAUM 67933; HVAA, 2026).
En iNaturalist hay 25 observaciones de Dicksonia o de Dicksoniaceae, sin contar Lophosoria, en el oriente de Antioquia: las 24 que llegan a especie llevan el nombre «D. sellowiana», y la mayoría muestra escamas en vez de pelos (iNaturalist, 2026). Dicksonia sellowiana no crece en Colombia. En este conjunto, por tanto, la mayoría de las identificaciones están erradas. No es por descuido de quienes observan. Ese nombre todavía lo llevan la mayoría de los registros colombianos de Dicksonia en GBIF, y los helechos arborescentes necesitan muchos caracteres para identificarse con certeza: el hábito, la forma de la fronda, el número de pinnas, el tipo de escamas o pelos del pecíolo a las pínnulas, el tipo de indumento furfuráceo del pecíolo, la forma de las pinnas y de las pínnulas, la forma de los soros, el tipo de indusio (esferopteroide, ciateoide u otros) y la longitud de las paráfisis, los pelos del interior del soro. Hay excepciones, como la observación de Pueblo Rico que trato más adelante (Figura 6), en la que sí quedaron registradas las estructuras que permiten una identificación inequívoca. Los muestreos de 2014 en el complejo de páramos de Sonsón, hechos casi siempre por encima de 2.800 m, registraron como única Dicksoniaceae a Lophosoria quadripinnata (Alzate & Sarrazola, 2025). Un inventario de CORNARE de 2016 en la vereda El Popal, en Río Verde de los Henaos, a 1.930–2.049 m, registró helechos arborescentes de la familia Cyatheaceae, pero ninguna Dicksoniaceae (García Morera et al., 2018).
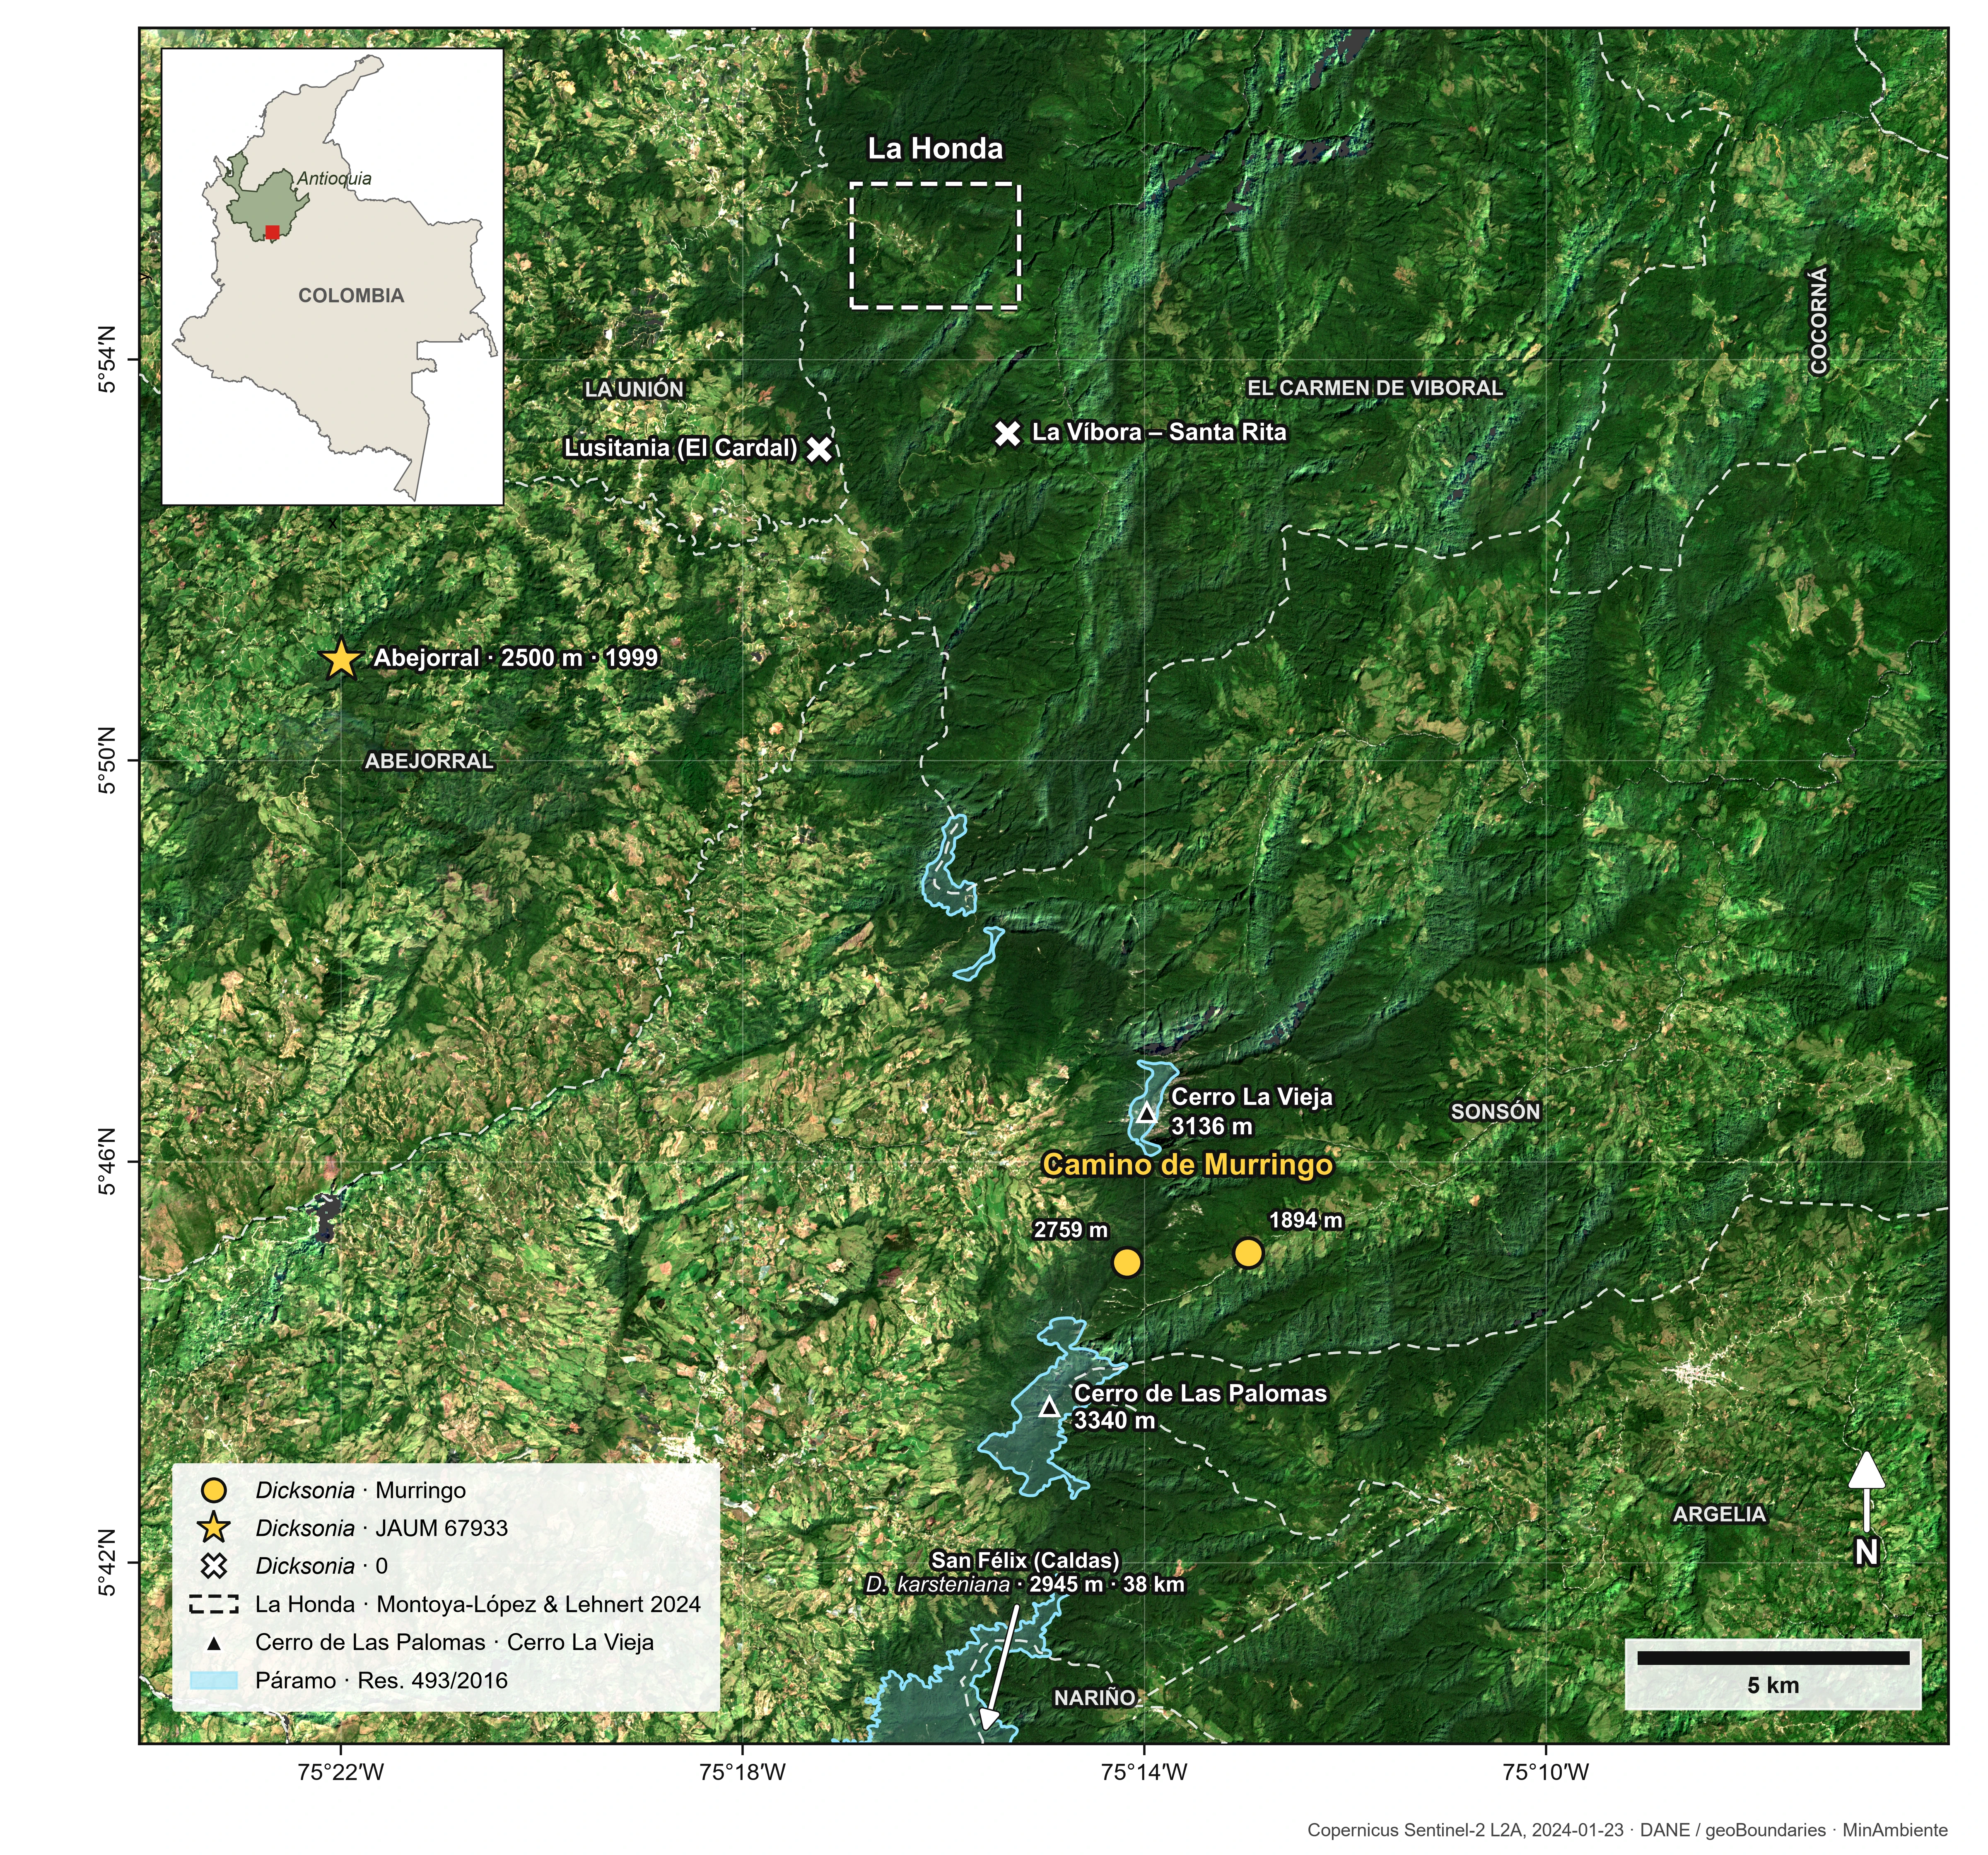
En esta nota informo de Dicksonia en el camino de Murringo, corregimiento Río Verde de los Montes, Sonsón, entre 1.894 y 2.759 m, en la vertiente del Magdalena de la cordillera Central, en la ladera nororiental del Cerro de Las Palomas, entre 3 y 4,6 km de su cumbre (Figura 1). Comparé el material fotografiado cerca del mirador con dos ejemplares de referencia de Antioquia y con fotos de una planta de D. navarrensis de Pueblo Rico (Risaralda), en la región del Chocó, y lo determiné, con dudas, como D. cf. navarrensis. También registro que no lo he encontrado hacia el norte, en dirección a La Honda.
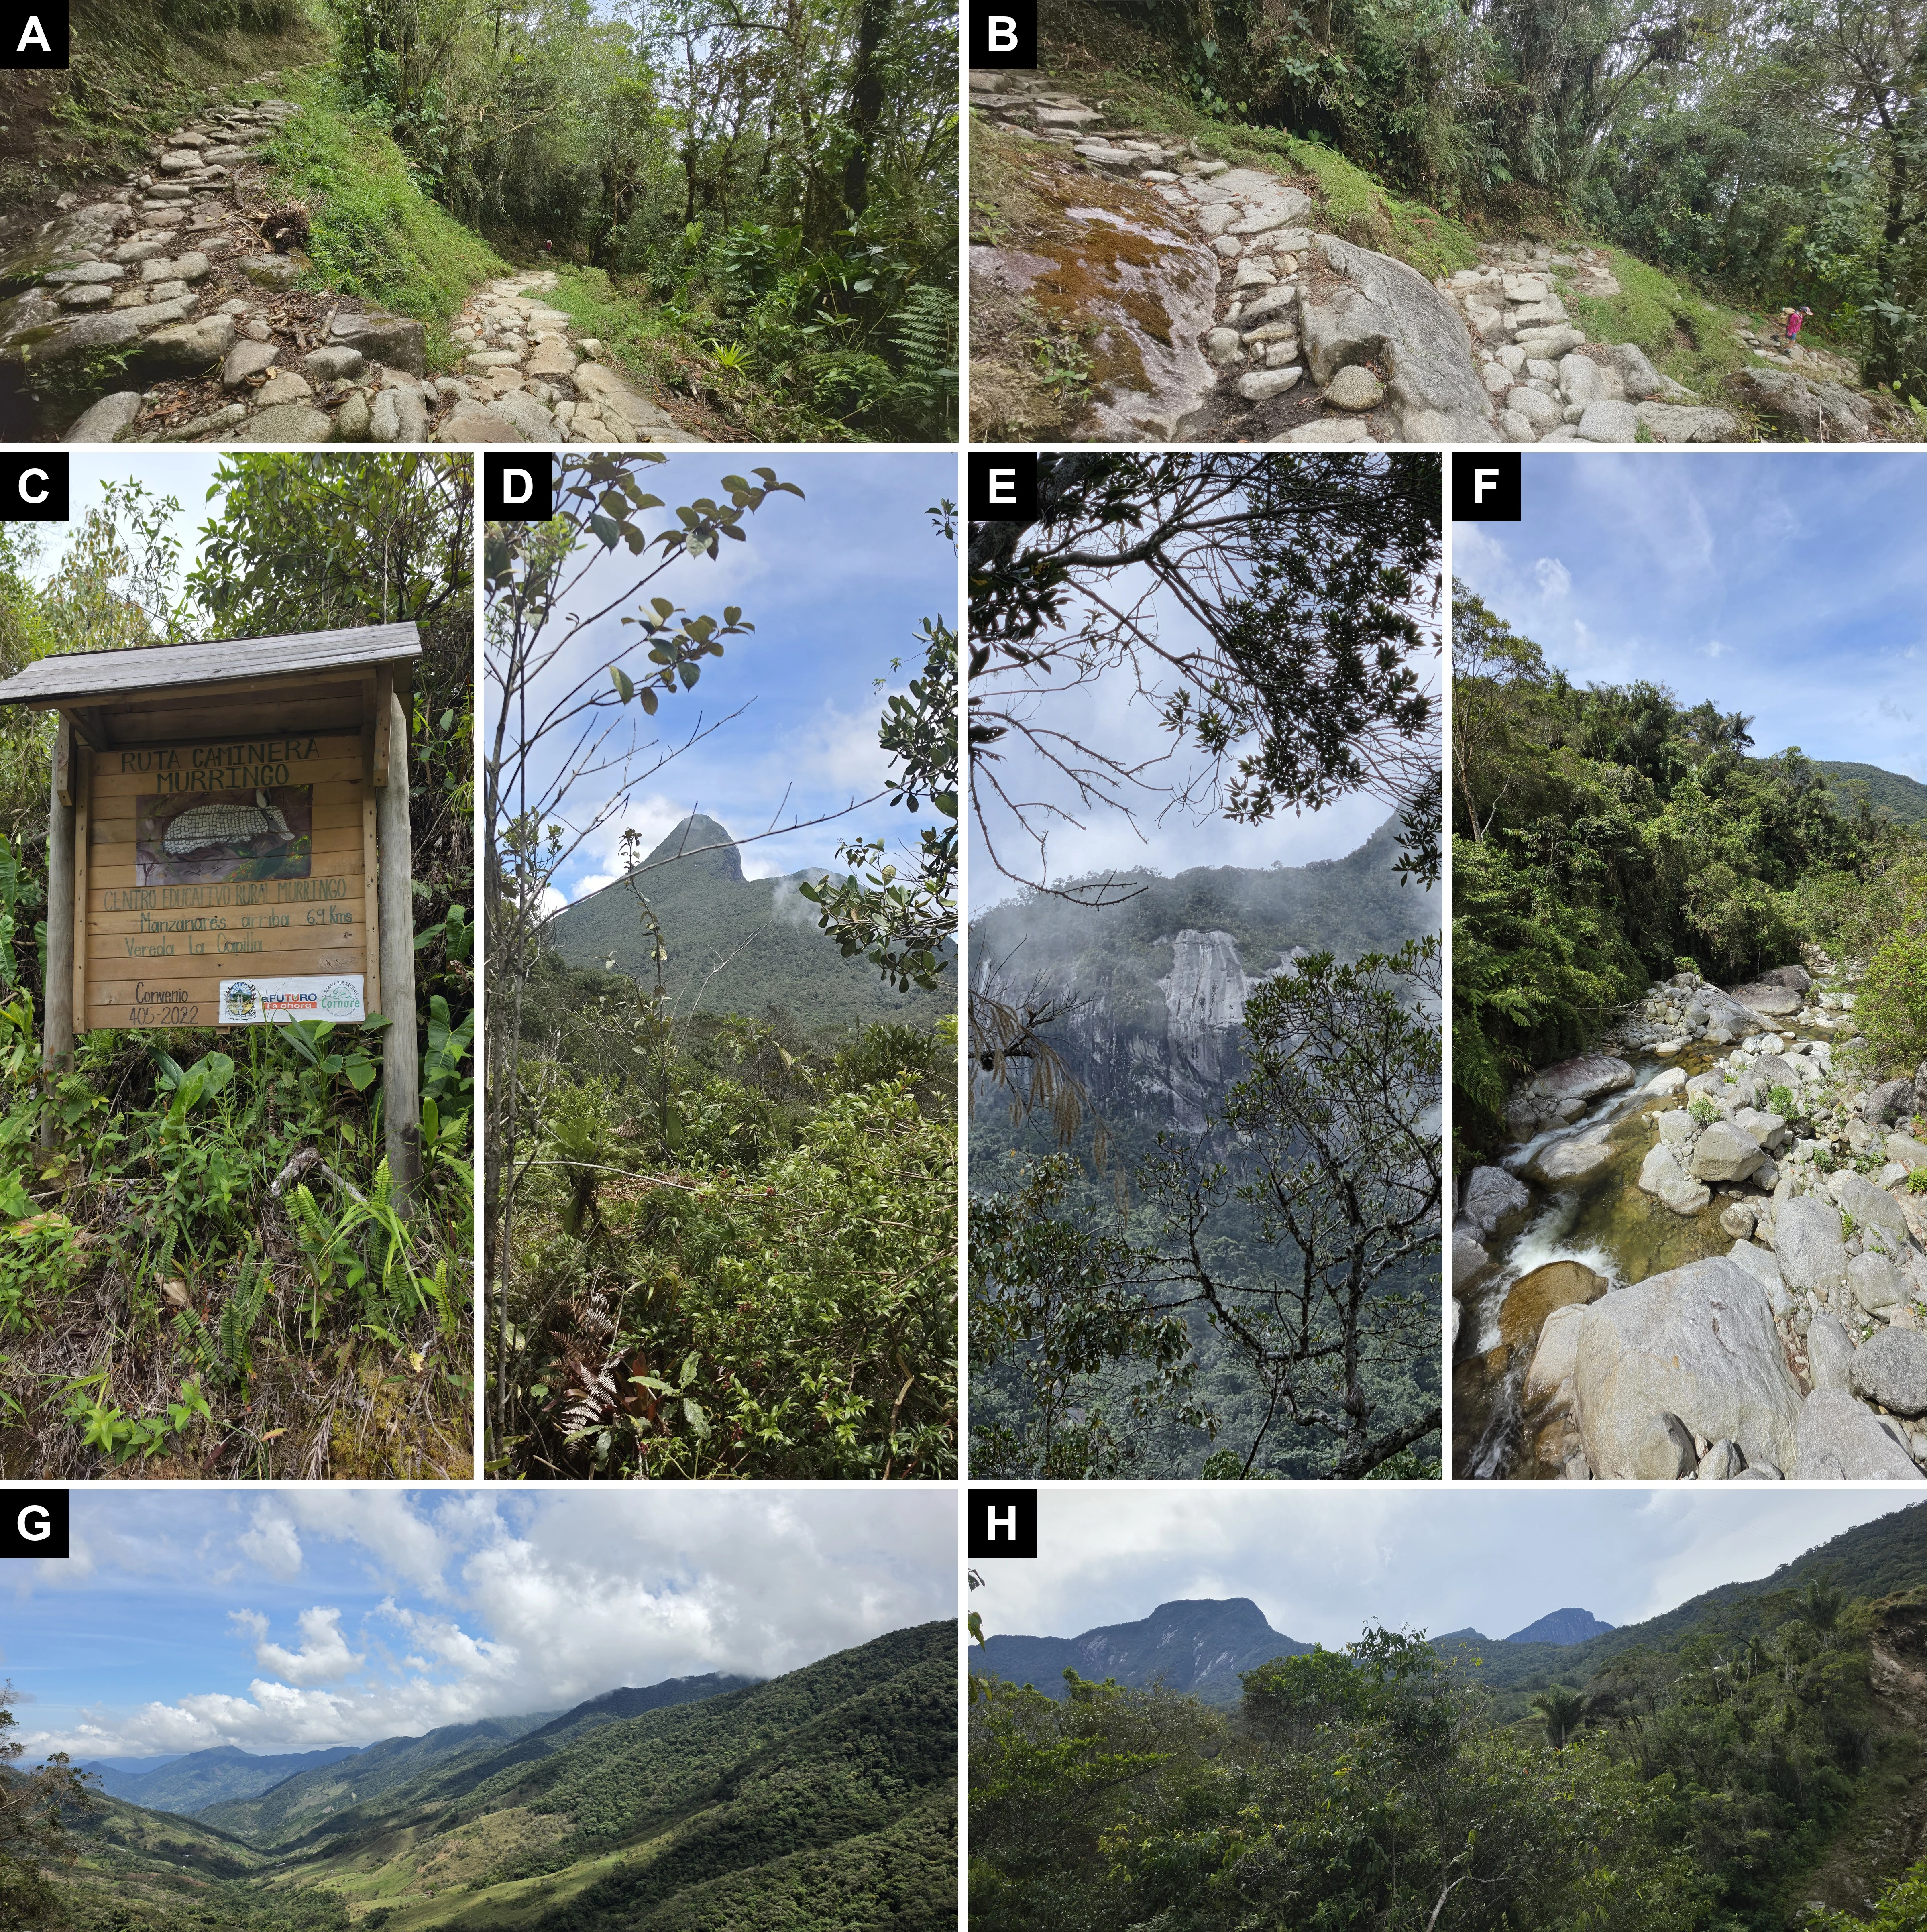
El camino de Murringo
A comienzos del siglo XX las familias Montes y Loaiza, campesinos del altiplano, abrieron trochas desde el paraje de La Palmita, al pie del páramo, y una de ellas se convirtió en el camino actual de Río Verde de los Montes (Arroyave Arrubla, 2017: 59–60).
Entre 1950 y 1980 los arrieros llevaban por él maíz y frijol a Sonsón. La ruta desde Santa Rosa, con descansos en La Soledad, La Capilla, Murringo y La Palmita, pasaba por el boquerón del páramo de Sonsón, y cada viaje, de ida y vuelta, tomaba cerca de una semana (Arroyave Arrubla, 2017: 74–75). En esas décadas las mulas reemplazaron a los bueyes, los caminos se arreglaron con piedra y empalizadas, y el camino de Murringo dejó el sector Río Arriba para llegar, por una ruta más corta, a La Bodega, en la vereda Manzanares (Arroyave Arrubla, 2017: 75). Hacia la misma época, con convites, se abrió el camino a Argelia, más cercana, y el comercio se fue desviando hacia allá (Jiménez Gómez, 2017: 187–189; Arroyave Arrubla, 2017: 54).
En el sector de las observaciones, el camino baja desde un mirador a 2.759 m, 3,0 km al nor-noreste de la cumbre del Cerro de Las Palomas, hasta un puente sobre el río Verde a 1.894 m (Figuras 1 y 2). En línea recta, los dos puntos están a 2,2 km, con 865 m de desnivel. El mirador queda dentro del Distrito Regional de Manejo Integrado (DRMI) Páramo de Vida Maitamá–Sonsón, que CORNARE declaró en 2019 mediante el Acuerdo 388, a 1,1 km de su límite. El puente queda prácticamente en el límite, justo donde este llega al río Verde de los Montes (CORNARE, 2019; PNNC, 2026).
Registro
Nuevo registro. COLOMBIA — Antioquia • Sonsón, corregimiento Río Verde de los Montes, camino de Murringo, entre el mirador y el puente sobre el río Verde; mirador, 05°44.994′N, 075°14.171′W, 2.759 m s.n.m. (GPS); puente, 05°45.091′N, 075°12.965′W, 1.894 m s.n.m. (modelo Copernicus GLO-30); 29 sep. 2026; A. Montoya-López obs.; registro fotográfico, sin especímenes depositados en herbario.
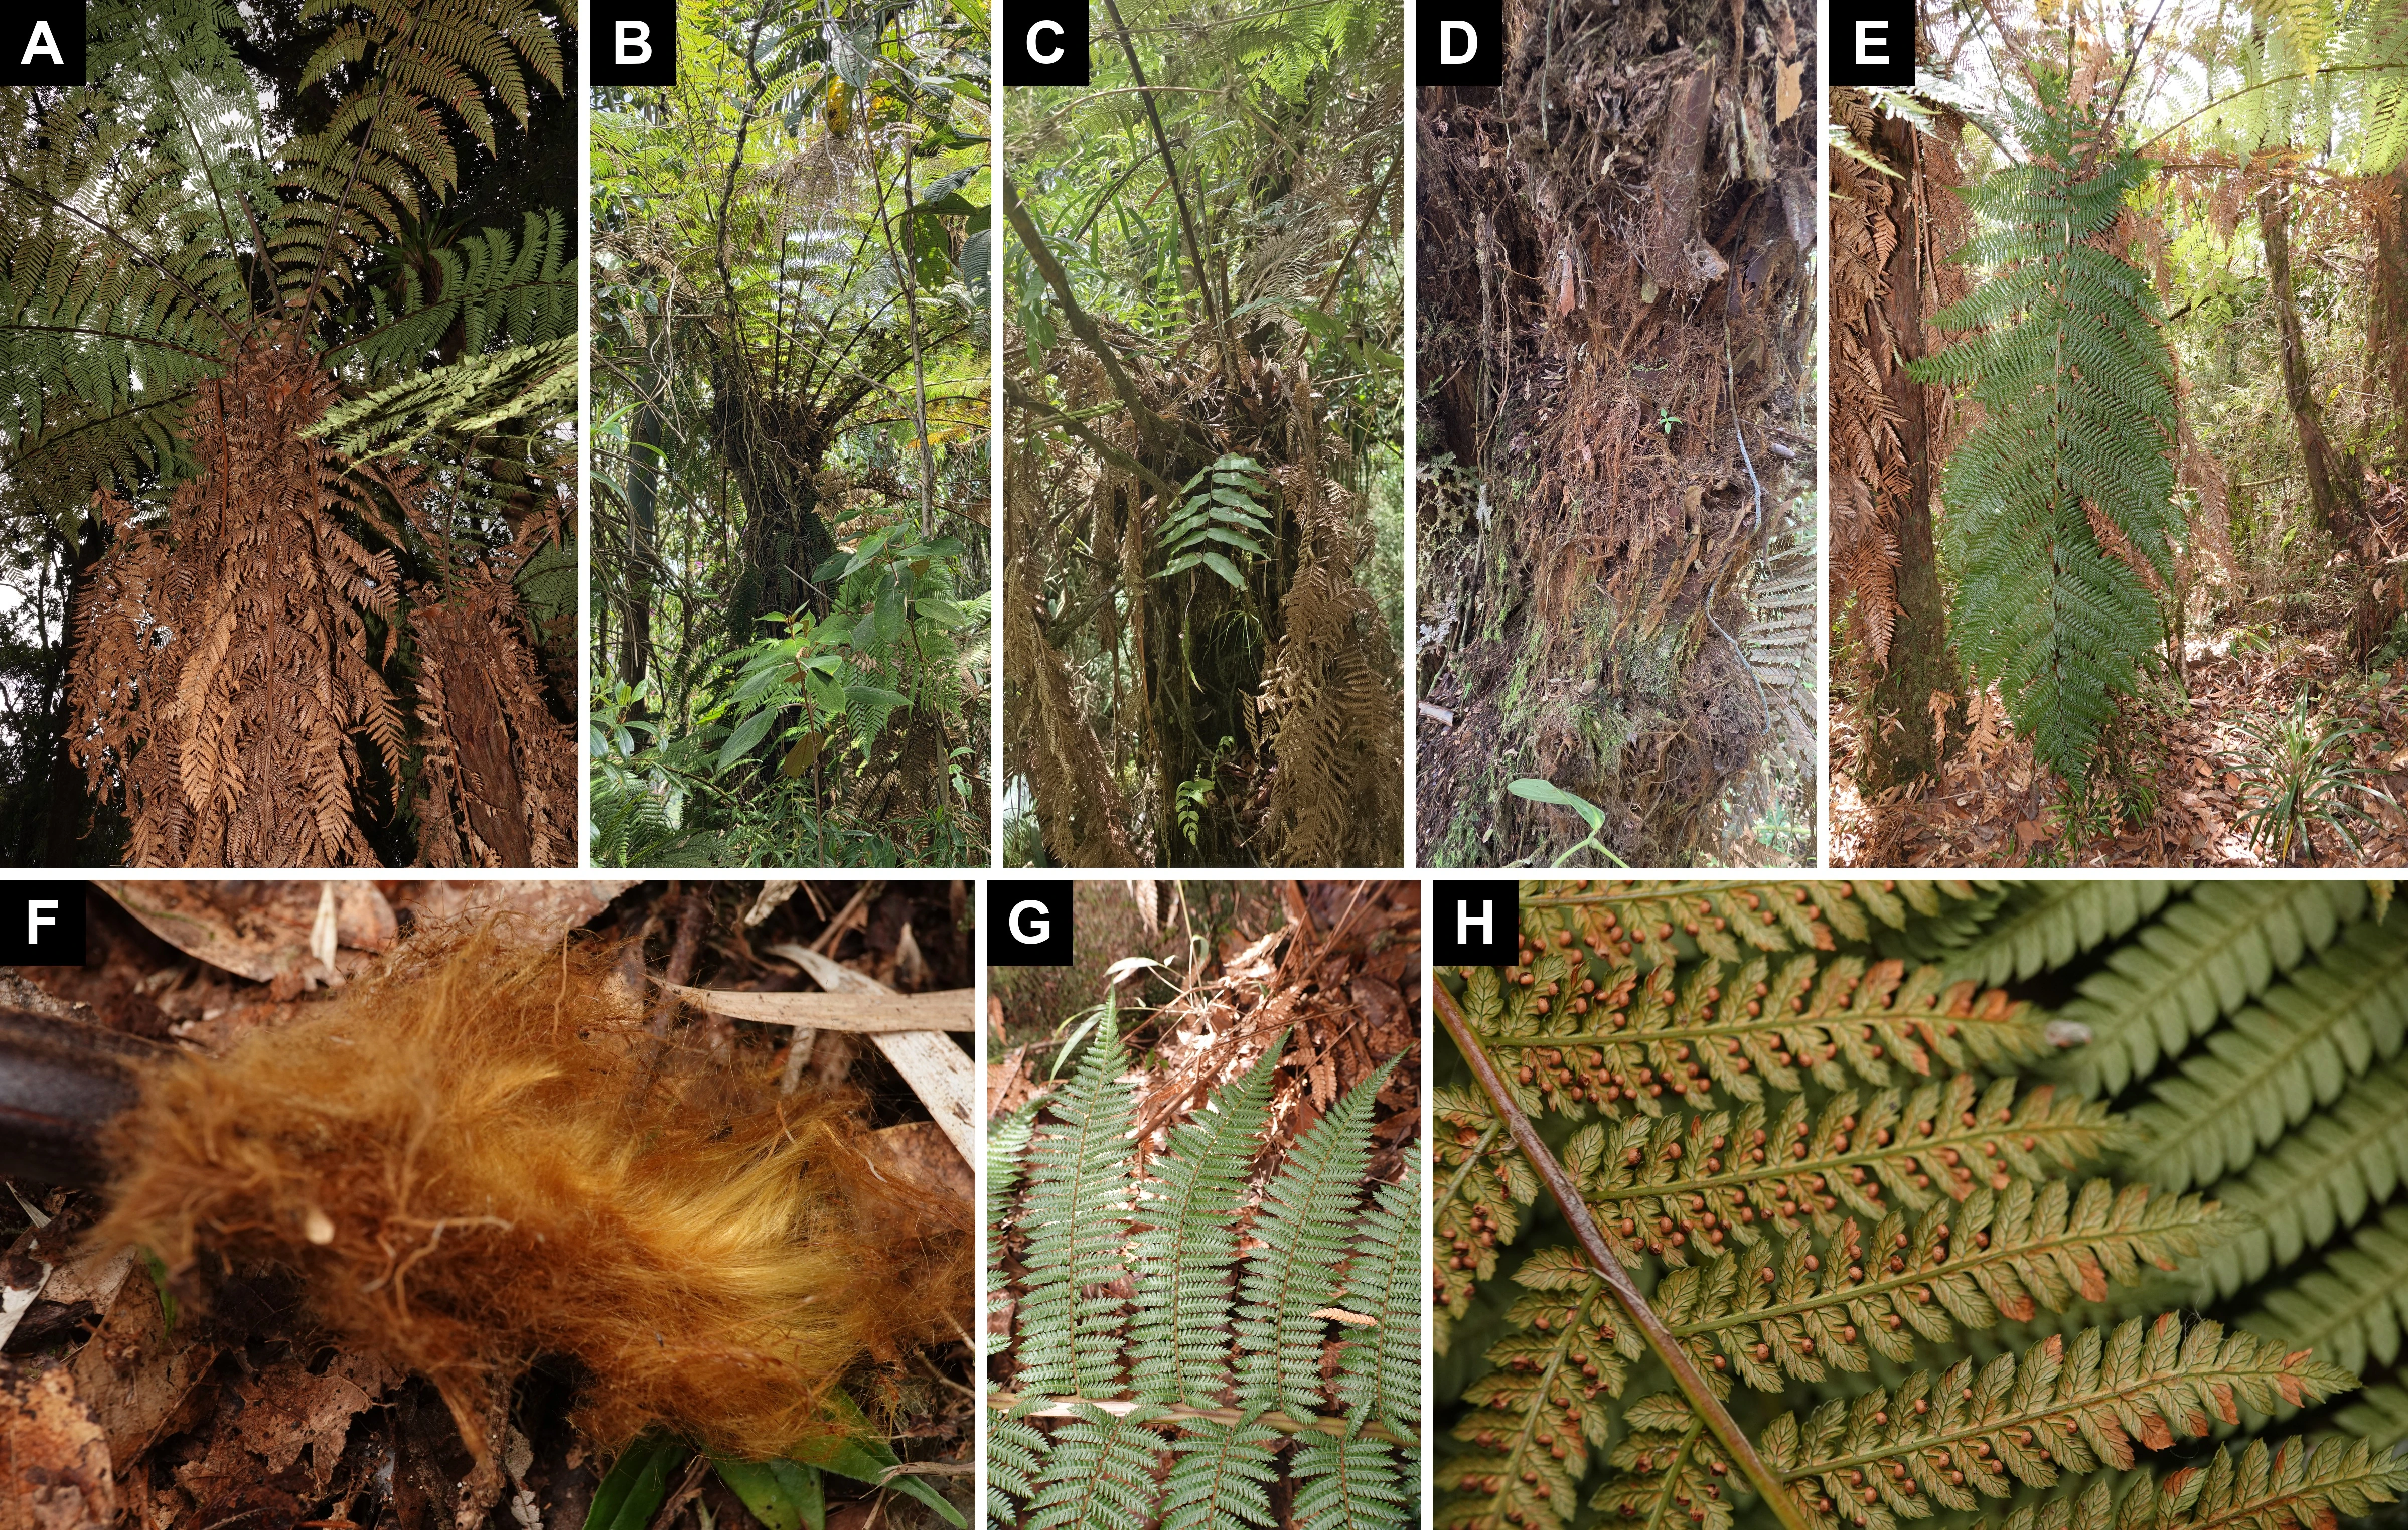
Vi Dicksonia a lo largo de todo el camino, entre el mirador y el puente. Son helechos arborescentes con una falda de frondas muertas que en algunas plantas oculta el tronco (Figura 3A; véanse también B y C). Los pelos sin escamas en la base del pecíolo y los soros marginales en el extremo de las venas son caracteres de Dicksonia (Noben et al., 2018: 839; Cárdenas et al., 2019: 17–18). Lophosoria quadripinnata, la otra Dicksoniaceae de la región, no forma tronco y no tiene indusio (Montoya-López & Lehnert, 2024).
Identificación
Noben et al. (2018: 841) separan las especies sobre todo por el tipo de pelos del pecíolo, la longitud del pecíolo en las frondas fértiles, la pilosidad del raquis por el envés, la extensión de los pelos sobre los ejes y las venas por el envés y el diámetro de los soros. Advierten que el aspecto de los pelos, la forma de las pinnas basales y las yemas adventicias se ven mejor en el campo, porque pueden perderse al herborizar (Noben et al., 2018: 846). Los caracteres que pude ver hacen improbables D. lehnertiana y D. stuebelii. Por el envés de la pinna fértil (Figura 3H), los nervios medios de los segmentos y la lámina entre las venas se ven glabros, mientras que las dos especies tienen pelos sobre las venas y entre ellas (Noben et al., 2018: 846, 851, 855); además, las plantas que fotografié conservan una falda densa de frondas muertas (Figura 3A, C), que D. lehnertiana y D. stuebelii por lo general no forman (Noben et al., 2018: 841). Dicksonia stuebelii tiene pínnulas lineares con segmentos redondos (Noben et al., 2018: 846, 855), y las de Murringo son pinnatífidas, de segmentos aserrados (Figura 3G). Dicksonia lehnertiana tiene pelos patentes, rígidos y de base endurecida (Noben et al., 2018: 846, 851), y los de la base de pecíolo suelta que fotografié cerca del mirador son largos, finos y lustrosos (Figura 3F). Dicksonia sellowiana queda fuera por su distribución (Noben et al., 2018: 841). Quedan D. karsteniana y D. navarrensis, que la clave separa en su última copla.
Dicksonia navarrensis tiene los pelos externos del pecíolo enredados y enmarañados, de pared delgada. Solo de Panamá a Ecuador puede llevar yemas adventicias en la base de los pecíolos, en lugar de los 1–2 pares de pinnas basales, y sus soros, de 1,0–1,2(–1,5) mm de diámetro, por lo general no se tocan y dejan ver el nervio medio. Dicksonia karsteniana tiene los pelos externos patentes y turgentes, nunca lleva yemas en la base del pecíolo, y sus soros, de (1,2–)1,5–2,0 mm de diámetro, por lo general se tocan y a menudo tapan el nervio medio; los maduros a menudo cubren el envés del segmento (Noben et al., 2018: 846).
Los autores dan también los intervalos altitudinales: 940–2.450(–2.800) m para D. navarrensis y (1.200–)1.800–3.300(–3.600) m para D. karsteniana (Noben et al., 2018: 847, 853). En Antioquia, los ejemplares de D. navarrensis que citan van de 1.428 a 2.200 m, y los de D. karsteniana var. karsteniana, de 2.550 a 2.980 m (Noben et al., 2018: 849, 853).
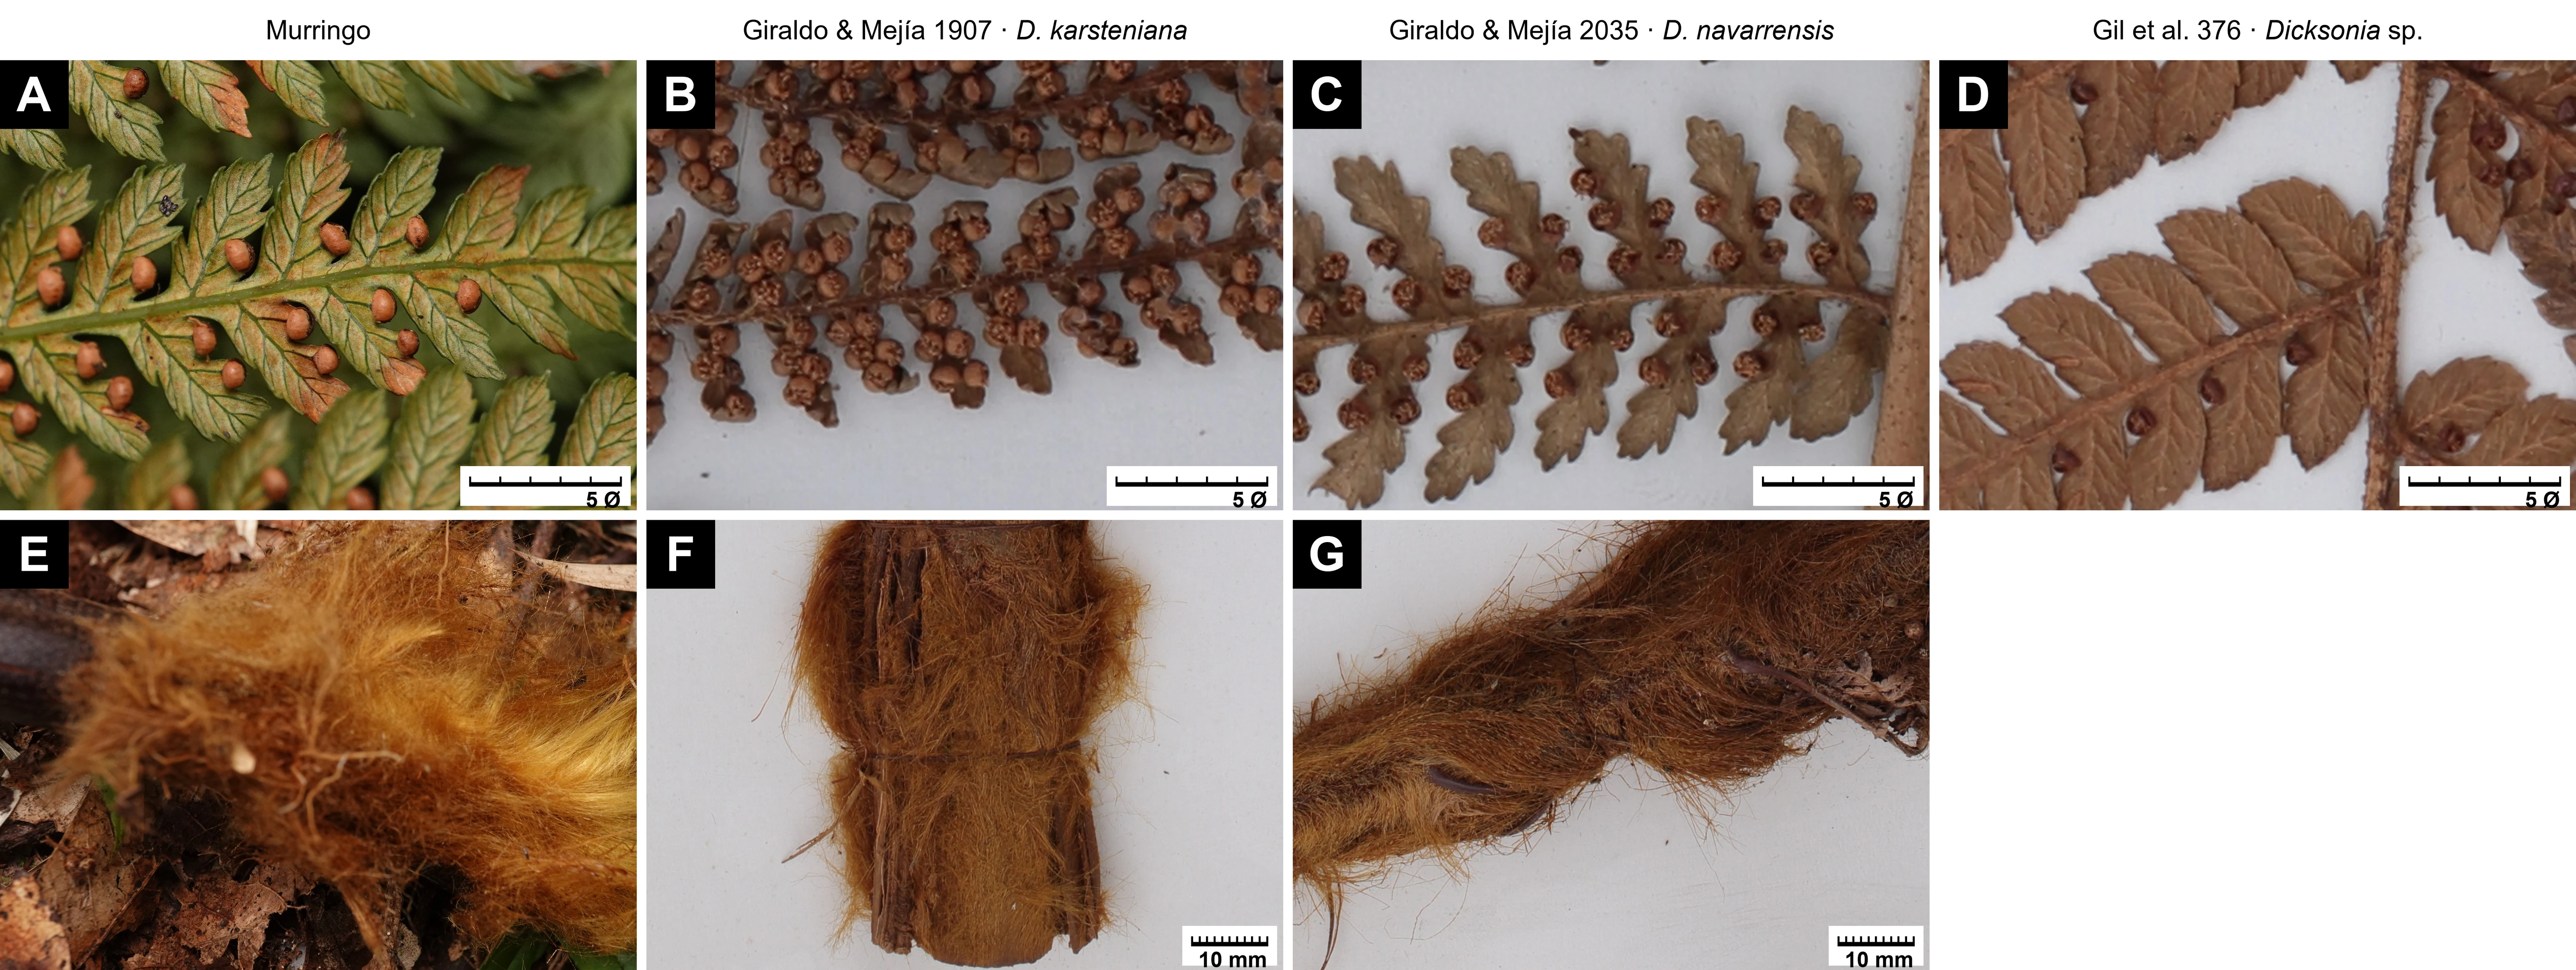
Para tener una referencia concreta, medí las imágenes de dos ejemplares de Antioquia que citan Noben et al. (2018) (HVAA, 2026; Figura 4). Uno es D. karsteniana var. karsteniana, F. Giraldo & S. Mejía 1907 (JAUM), de Belmira, Alto del Yerbal, a 2.650 m. El otro es D. navarrensis, F. Giraldo & S. Mejía 2035 (JAUM), de Amalfi, sector de la Cascada, a 1.650 m. Medí cada ejemplar en dos rondas, sobre soros y segmentos distintos, calibrando cada imagen con la regla impresa del pliego, mediante un script de Python.
En el ejemplar de Belmira los segmentos fértiles están contraídos, y los soros se tocan y tapan el nervio medio. En el de Amalfi los segmentos son foliosos y lobados, y los soros pareados quedan separados por una franja de lámina donde corre el nervio medio (Figura 4E, G). Los soros abiertos miden casi lo mismo en los dos, unos 1,4–1,5 mm de mediana. En el de Amalfi, los soros (unos 1,5 mm) y su distancia al nervio medio (unos 1,4 mm) quedan en el borde o fuera de los intervalos de la clave para D. navarrensis y dentro de los de D. karsteniana, aunque Noben et al. (2018) lo citan como D. navarrensis; la clave da la distancia al nervio medio como carácter ambiguo. No separan los dos ejemplares el diámetro del soro, que es casi el mismo, sino el tamaño del segmento (unos 5 mm en el de Belmira, contraído, frente a unos 10 mm en el de Amalfi) y la distancia del soro al nervio medio (como mucho unos 0,7 mm, frente a unos 1,4 mm); de ahí que para Murringo use proporciones respecto al diámetro del soro, que no necesitan escala. En estas dos imágenes, el color de los pelos de la base del pecíolo tampoco separa los ejemplares. Corregí el balance de blancos con el papel del pliego y medí el matiz mediano de los pelos en tres recortes de cada pecíolo: es de 21–23° en el de Belmira y de 19–25° en el de Amalfi, y las dos etiquetas dicen «tomento leonado». Es el color del material seco, no el de la planta viva, y Noben et al. (2018: 846) no usan el color de los pelos en la clave para separar estas dos especies. Sí difieren en la textura del manto: denso y compacto, pegado al pecíolo, en el de Belmira, y largo, suelto y desgreñado en el de Amalfi (Figura 4F, H).
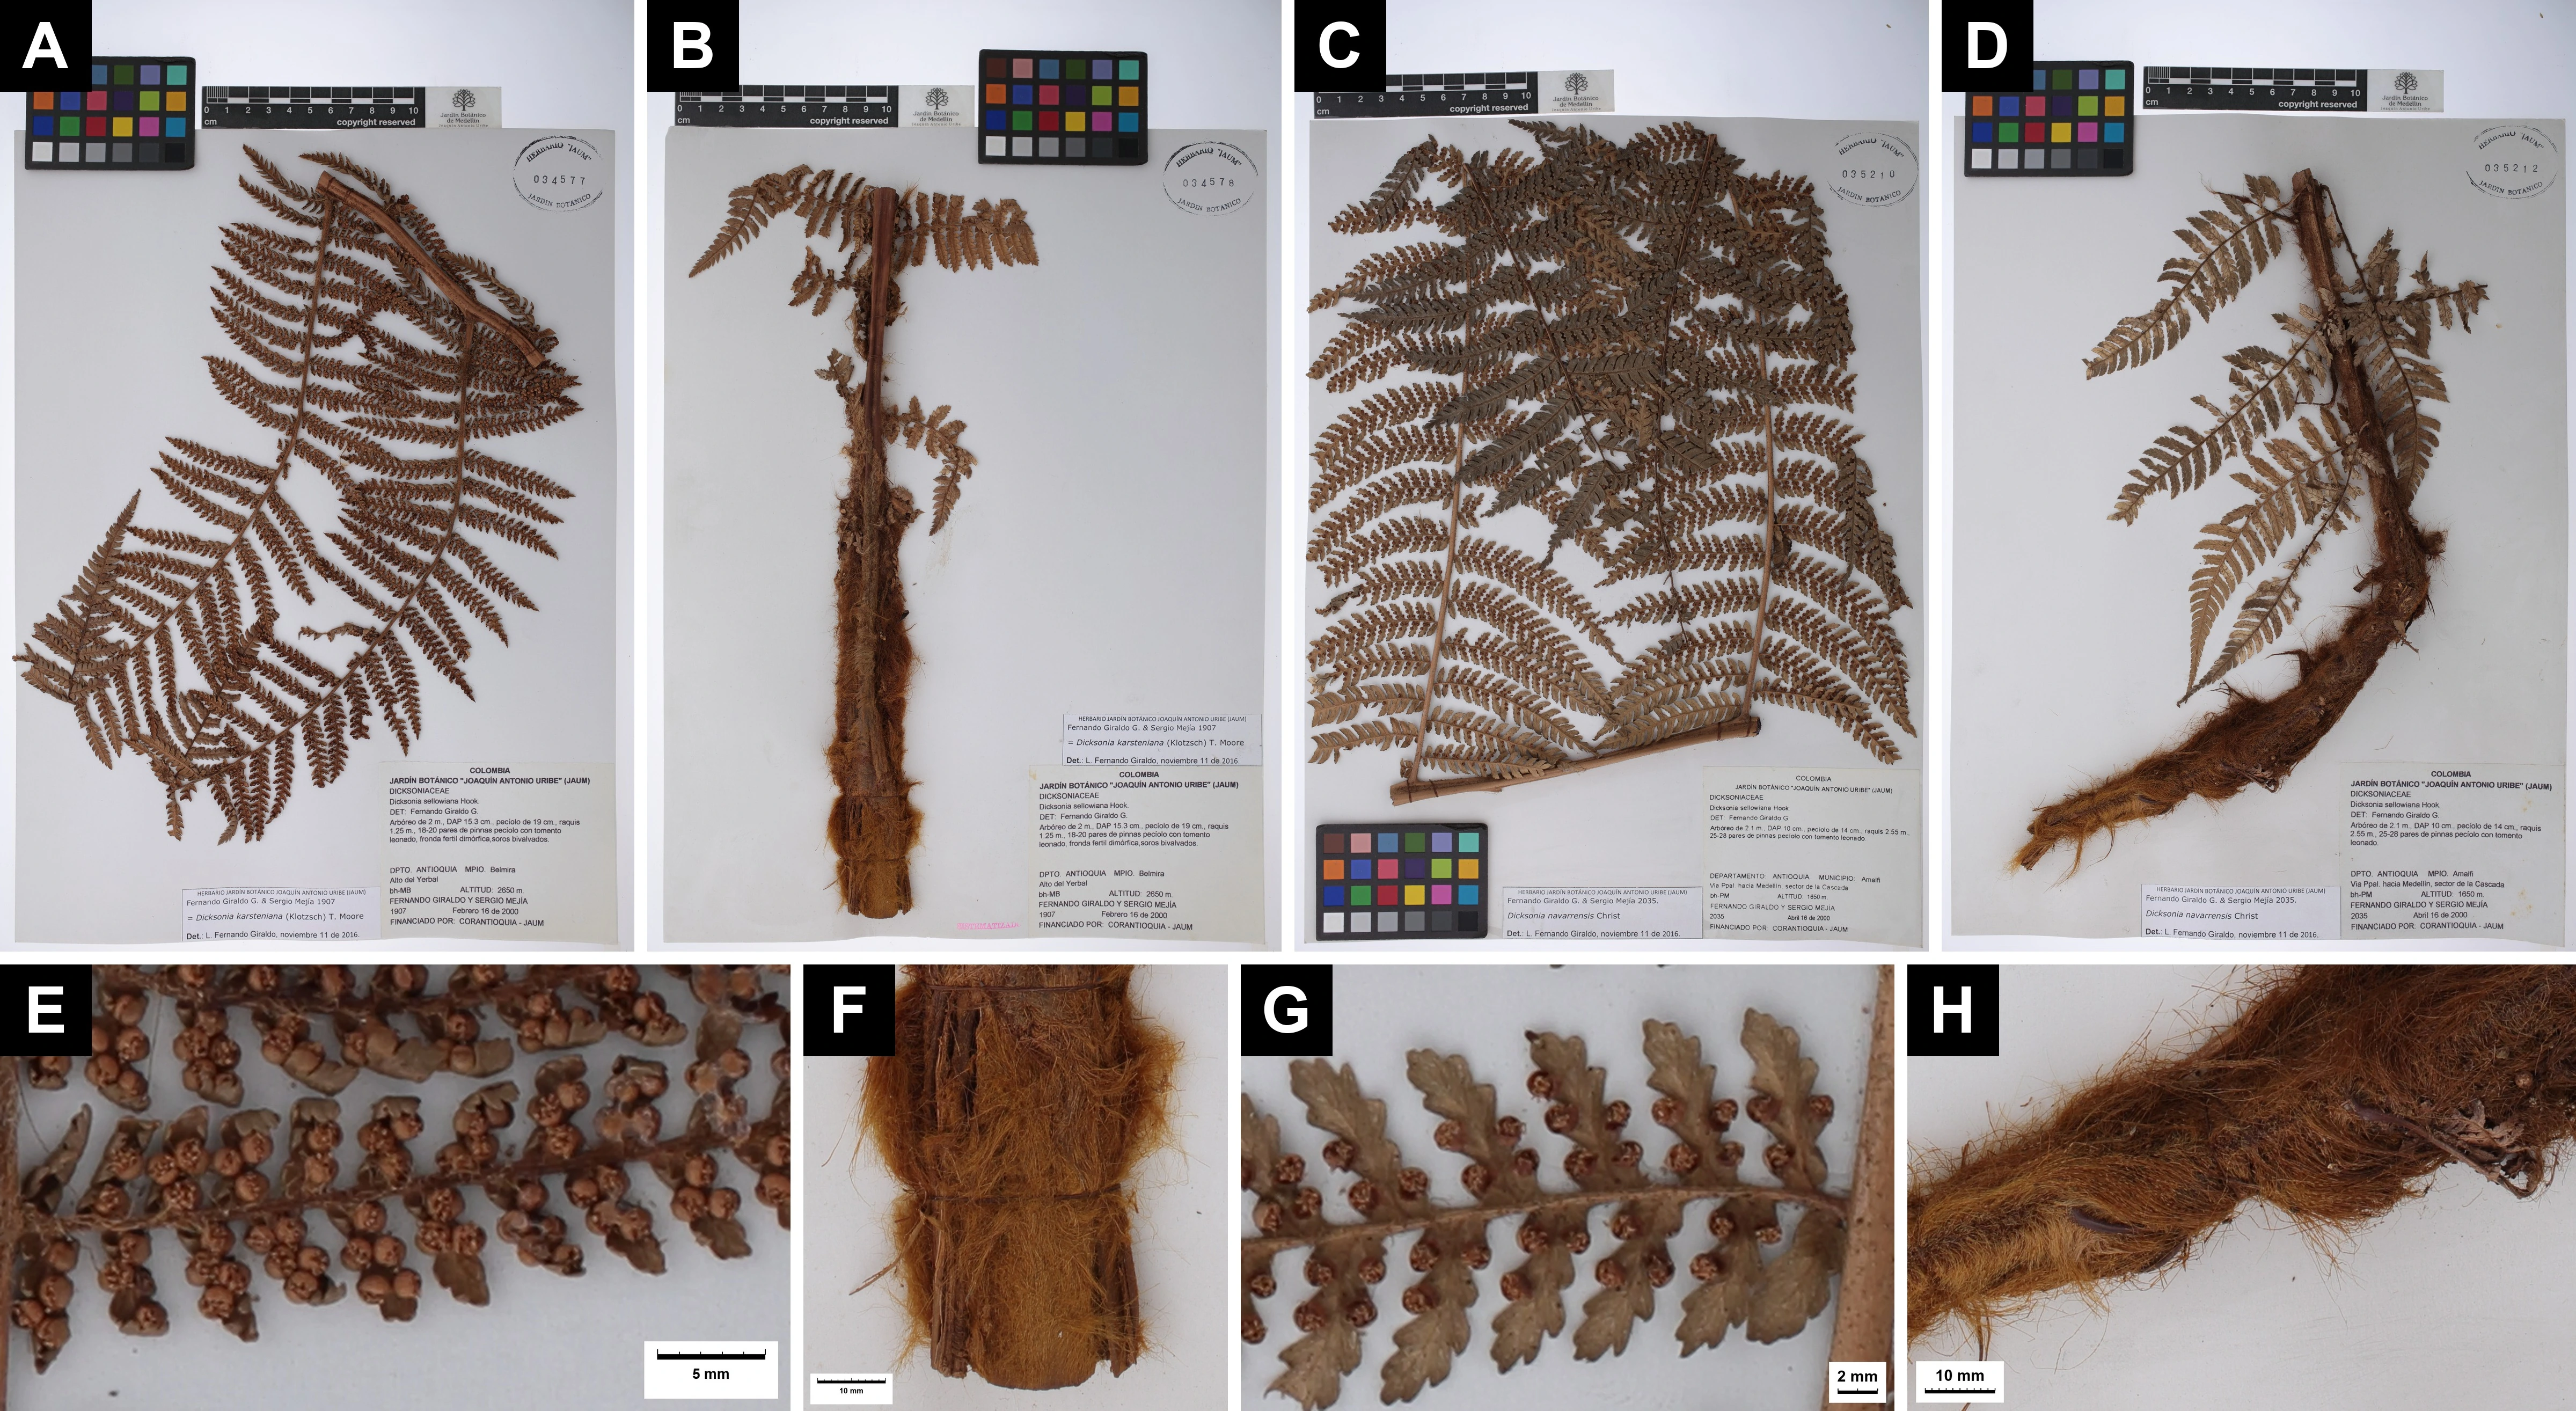
La foto de los soros de Murringo no tiene escala, así que la comparé con los dos ejemplares de referencia y con el pliego de Abejorral mediante proporciones que no dependen de ella, medidas en la misma pinna de la Figura 3H (Figura 5A–D). En la tabla, los valores con paréntesis son medianas, con el rango intercuartílico y el mínimo–máximo; n cuenta soros o segmentos de una sola pinna o de un solo pliego, no plantas, así que la tabla compara Murringo con esos tres ejemplares y no mide la variación de cada especie.
| Carácter | Murringo | D. navarrensis, Giraldo & Mejía 2035 (JAUM), Amalfi | D. karsteniana, Giraldo & Mejía 1907 (JAUM), Belmira | Dicksonia sp., A. Gil et al. 376 (JAUM), Abejorral |
|---|---|---|---|---|
| Diámetro del soro / distancia al nervio medio | 0,95 (0,89–0,99; 0,73–1,42; n = 26 soros en 19 segmentos); sobre el eje largo del soro, 1,08 (0,99–1,13; 0,82–1,55) | 1,04 (0,94–1,17; 0,64–1,47; n = 41 soros, de 23 pares en 10 segmentos) | 1,96 (1,80–2,08; 1,45–2,57; n = 46 soros, de 24 pares) | 1,00 (0,78–1,18; 0,68–1,39; n = 19 soros en 18 segmentos)† |
| Longitud del segmento / diámetro del soro | 5,6 (5,1–6,2; 4,7–7,2; n = 11 segmentos enteros); sobre el eje largo del soro, unas 5,0 | 6,6 y 7,1* | 3,4 y 3,5* | 6,2 (5,1–6,6; 4,2–7,7; n = 18 segmentos) |
| Segmento fértil | Folioso, aserrado | Folioso, lobado | Contraído | Folioso, no contraído, crenado-aserrado |
| Soros por segmento | 1–2 visibles, 25 de 26 en el lado acroscópico; no se tocan; nervio medio visible en los 19 segmentos | 4–6 (2–3 pares, uno a cada lado); no se tocan; nervio medio visible | 2–5; se tocan y tapan el nervio medio | 1 (rara vez 2), basal y casi siempre acroscópico; no se tocan; nervio medio libre |
| Estado de los soros | Todos o casi todos cerrados | Abiertos | Abiertos | Abiertos o entreabiertos, la mayoría |
Nota de la tabla. Medí todos los soros medibles de una sola foto de la pinna de la Figura 3H (Figura 5A; 26 soros en 19 segmentos de dos pínnulas) y, en los ejemplares, soros y segmentos de las hojas JAUM 035210 (Amalfi) y JAUM 034577 (Belmira), en píxeles sobre las imágenes a resolución completa, convertidos a milímetros con la regla de cada pliego (12,51–12,55 px/mm). Medí cada ejemplar en dos rondas, sobre soros y segmentos distintos y con procedimientos distintos para ajustar el contorno del soro; el cociente entre las medianas del diámetro y de la distancia al nervio medio fue de 1,03 y 1,09 en el de Amalfi y de 1,95 y 2,00 en el de Belmira. El diámetro del soro es, en Murringo, la media entre el eje largo del contorno del soro cerrado, con su borde oscuro, y su anchura perpendicular a ese eje; en los ejemplares, el diámetro del círculo ajustado al contorno externo de la copa indusial abierta. Tomé como receptáculo el centro del soro; en Murringo, donde los soros cerrados son oblongos (Noben et al., 2018: 847, 852), ese centro puede no coincidir con él. La longitud del segmento es la cuerda desde la línea media de la cóstula hasta el ápice, sin corregir la curvatura; en Murringo solo la medí en los 11 segmentos que se ven enteros. En Murringo medí la distancia al nervio medio en perpendicular, desde el centro de cada soro hasta el nervio, que tracé en los 19 segmentos. En los ejemplares el nervio medio no se distingue por el envés, así que lo situé entre las dos filas de soros y usé la mitad de la distancia entre los centros de los dos soros de cada par opuesto. En el de Amalfi la proyecté sobre la perpendicular al eje del segmento, lo que equivale a la media de sus dos distancias al nervio si este corre entre ellos y paralelo al eje. En el de Belmira la medí en línea recta. Allí los soros de cada par se tocan sobre el nervio, y como la suma de las distancias de dos puntos a una recta que pasa entre ellos no supera la distancia entre los puntos, esa mitad es un máximo de la distancia media al nervio, y el cociente, un mínimo. En Murringo no pude usar ese método, porque 25 de los 26 soros están en el lado acroscópico del segmento; en el único par opuesto, la mitad de la distancia entre centros supera en un 6,5 % a la media de las dos distancias medidas al nervio. En los ejemplares, la dispersión del cociente entre el diámetro y la distancia al nervio refleja la de los pares, no la de cada soro. *En los ejemplares, el cociente entre la longitud del segmento y el diámetro del soro es el de las medianas de los segmentos fértiles y de los soros en cada una de las dos rondas; no son intervalos de observaciones. En el pliego de Abejorral (JAUM 67933; 12,50 px/mm) medí soros y segmentos en dos rondas, una en cada mitad de la pinna, y las comprobé con una tercera muestra; los cocientes entre la longitud del segmento y el diámetro del soro reúnen las tres. Allí casi todos los soros son basales y van uno por segmento, en el seno, así que su distancia al nervio medio equivale casi a medio ancho del segmento; en los pocos pares opuestos es menor, de unos 1,2–1,3 mm. †En un soro corregí el diámetro, que el ajuste del contorno había inflado (de 1,79 a 1,58 mm); sin esa corrección el máximo sería 1,57.
La distancia al nervio medio no se midió igual en Murringo y en los ejemplares (véase la nota de la tabla). Además, los soros de Murringo estaban todos o casi todos cerrados y eran pocos. En los segmentos fotografiados, y en ese estado, no se tocan (la menor separación entre dos soros es de unos 0,4 diámetros) y su borde queda a 0,2–0,9 diámetros del nervio medio; como casi todos están en el lado acroscópico, esta pinna no permite ver si los soros de uno y otro lado llegarían a tocarse sobre el nervio. Para que el cociente entre el diámetro y la distancia al nervio medio llegara a la mediana del ejemplar de Belmira, los soros de Murringo tendrían que medir, abiertos, unas 2,1 veces su diámetro cerrado, y al abrirse bajaría el cociente entre la longitud del segmento y el diámetro. Los cocientes eliminan la escala, pero no la perspectiva de una foto de una pinna viva, la contracción por el prensado, la posición en la fronda ni la madurez. El cociente entre la longitud del segmento y el diámetro del soro queda entre los de los ejemplares de Belmira y Amalfi, pero el del diámetro del soro y su distancia al nervio medio está cerca de los de Amalfi y Abejorral. Con segmentos foliosos, soros aislados y el nervio medio libre, la lámina fértil de Murringo se parece más al ejemplar de D. navarrensis que al de D. karsteniana, aunque este viene casi de la misma altitud. Es una comparación descriptiva con dos pliegos, uno por especie, y tomo los cocientes como exploratorios: no bastan para decidir la especie.
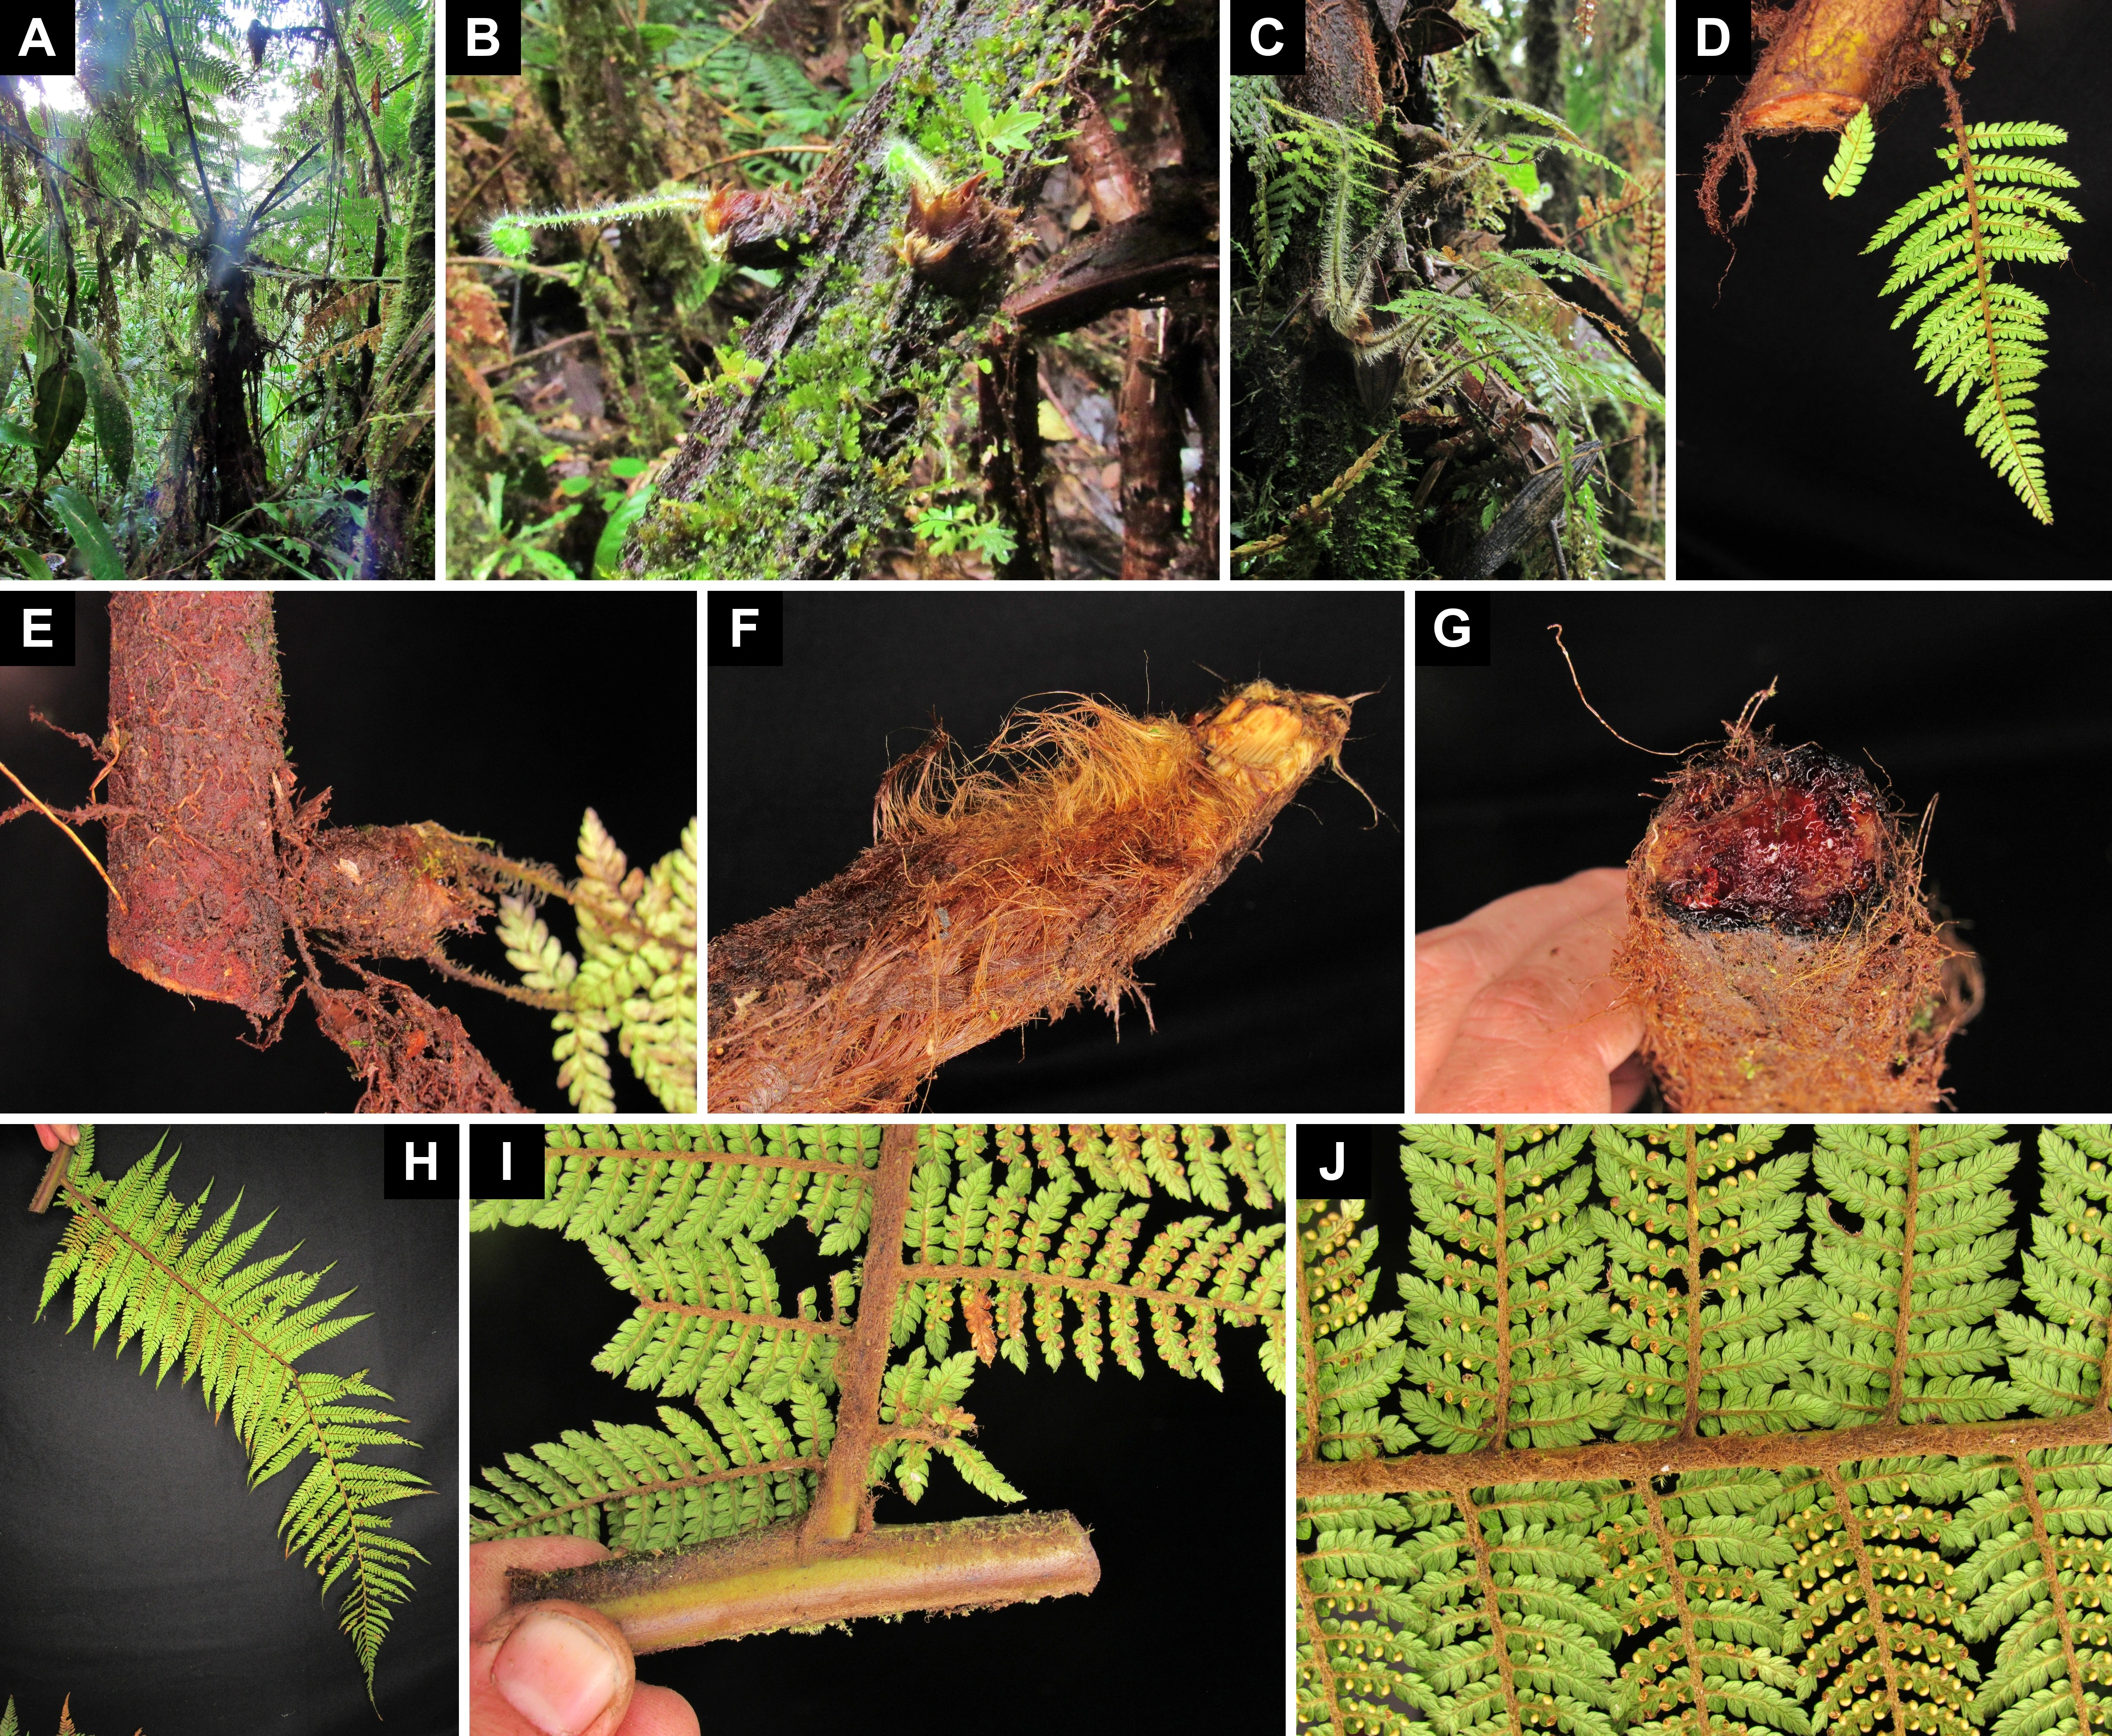
Para ver cómo son las yemas de D. navarrensis, revisé las fotos de la observación de iNaturalist 339463561, de Pueblo Rico (Risaralda), PNN Tatamá, tomadas por Jonatan Castro Hernández el 5 de febrero de 2022 y vinculadas por él al ejemplar Castro-Hernández et al. 1819 (BRIT), de 2.412 m (Castro Hernández, 2022). Ese ejemplar está determinado como D. navarrensis por J. Castro y A. Zuluaga en 2022, y su etiqueta dice «20 pares de pinnas, yemas prolíficas» (Pteridoportal, 2026). En las fotos se ven dos yemas cubiertas de mechones pardo-rojizos y brillantes, una a cada lado de un eje, de las que salen un pecíolo joven y un báculo (Figura 6B); un grupo de frondas juveniles que brota en el extremo de una base de pecíolo persistente en el tronco, o junto a él (Figura 6C); y plantas jóvenes unidas al costado de ejes cortados, cuyo punto de origen no se ve (Figura 6D, E). La observación de Pueblo Rico está en la región del Chocó, a 0,45 km del registro de D. navarrensis del Cerro Montezuma, a 2.080 m, que citan Noben et al. (2018: 853). Murringo está en la vertiente del Magdalena de la cordillera Central.
Identificación. Determino el material examinado cerca del mirador (Figura 3A, E–H), con dudas, como Dicksonia cf. navarrensis Christ. Me apoyo en el número de pares de pinnas, al menos 29, y en la lámina fértil, que se acercan más a D. navarrensis que a D. karsteniana. En contra está sobre todo la altitud, cerca del límite superior conocido de D. navarrensis. Los pelos de los ejes y las yemas no deciden. La planta es menos pelosa que la de Pueblo Rico y no le vi yemas, pero ninguna de las dos diferencias la aparta de D. navarrensis, como explico a continuación.
Primero, la altitud, que tomo como contexto biogeográfico y no como carácter diagnóstico, porque los intervalos altitudinales de las dos especies se solapan (Noben et al., 2018: 847, 853). Según Noben et al. (2018: 847), en Colombia D. navarrensis crece sobre todo al occidente de la cordillera Occidental, por debajo de 2.000 m, mientras que D. karsteniana es común en la cordillera principal de los Andes, por encima de 2.000 m. Pero en Antioquia ese contraste geográfico no separa las especies: casi todos los ejemplares antioqueños de D. navarrensis que citan, incluido el de Amalfi, son de la cordillera Central, y de la cordillera Occidental citan D. karsteniana, en Jardín (Noben et al., 2018: 849, 853). Citan además D. navarrensis de Palestina (Huila), a 1.970 m (Noben et al., 2018: 853). Que Murringo esté en la vertiente del Magdalena de la cordillera Central pesa, por tanto, poco; lo que cuenta es la altitud. El material examinado se fotografió cerca del mirador, a unos 2.750 m. Esa altitud está dentro del intervalo usual de D. karsteniana y es casi la del ejemplar de Belmira, mientras que ninguno de los ejemplares colombianos de D. navarrensis que citan Noben et al. (2018: 853) pasa de 2.200 m, y los que llegan a 2.450–2.800 m son de Centroamérica. Aun así, 2.750 m cabe en el intervalo extremo de D. navarrensis, hasta 2.800 m (Noben et al., 2018: 853), así que el argumento no es decisivo. En la cordillera Occidental, D. navarrensis llega a 2.412 m en Pueblo Rico (Pteridoportal, 2026) y a 2.345 m en El Cairo (Valle del Cauca), y hay D. karsteniana a 2.426 m en Apía (Risaralda), a unos 16 km de Pueblo Rico (HUA, 2026): allí las dos especies crecen a la misma altitud y a poca distancia. La altitud de Murringo hace más probable D. karsteniana, pero no basta para descartar D. navarrensis.
Segundo, no vi yemas ni plántulas en la base de los pecíolos, y D. karsteniana nunca las tiene allí, aunque puede echar brotes laterales directamente del tronco tras una herida (Noben et al., 2018: 846). Si las hubiera visto, apoyarían con fuerza a D. navarrensis, porque son «el carácter distintivo más sobresaliente» de la especie (Noben et al., 2018: 854). Su falta, en cambio, no la uso como argumento, porque no pude evaluar bien el carácter: en la planta de la Figura 3A la falda de frondas muertas tapa las bases de los pecíolos unidas al tronco, que es donde brotan las yemas cuando la fronda se pudre (Noben et al., 2018: 842, 854). Aunque lo hubiera evaluado, pesaría poco. Los mismos autores solo las confirman desde el centro de Panamá por toda la región del Chocó colombiano (Noben et al., 2018: 854); en la clave las limitan a Panamá–Ecuador (Noben et al., 2018: 846); y escriben que la población del Chocó-Darién es la única que siempre las tiene y que al norte de Panamá no se conocen (Noben et al., 2018: 841). Su figura 1E muestra yemas de una planta rotulada «Dept. Caldas», pero el único ejemplar de D. navarrensis que asignan a Caldas, en el apéndice 1, es el del Cerro Montezuma (Risaralda), en la región del Chocó (Noben et al., 2018: 842, 853, 857). En el pliego de Amalfi hay estructuras juveniles dudosas entre los pelos que no permiten confirmar ni descartar yemas. Por eso no uso las yemas a favor de ninguna de las dos especies. Que no las viera tampoco aparta la planta de D. navarrensis: fuera del Chocó-Darién no son constantes (Noben et al., 2018: 841).
Tercero, el número de pares de pinnas apunta hacia D. navarrensis. En la fronda colgante de la Figura 3E solo conté como pinna cada división cuyo seno llega hasta el raquis, con base propia; hacia el ápice, las que ya se funden en una lámina continua y alada las tomé como parte del ápice. Con esa regla cuento 30 inserciones a cada lado del raquis, es decir, al menos 29 pares. Las más basales se distinguen peor, entre frondas de otras plantas, y la base de la fronda quedó fuera de la foto, así que pudo tener más pares basales, o yemas en su lugar. Esa cifra supera el intervalo de D. karsteniana, 15–20 pares, y también el de D. navarrensis, (18–)22–26, pero queda mucho más cerca de este (Noben et al., 2018: 847, 852). Según sus etiquetas, el ejemplar de Belmira tiene 18–20 pares y el de Amalfi, 25–28 (HVAA, 2026), el más cercano a Murringo; la D. navarrensis de Pueblo Rico tiene 20 (Pteridoportal, 2026), aunque su etiqueta no dice si se contaron las posiciones de las yemas, que reemplazan 1–2 pares basales (Noben et al., 2018: 846).
Cuarto, tampoco deciden los pelos de los ejes. En las fotos de Murringo tomadas cerca del mirador, el indumento conspicuo de pelos largos dorados a ferrugíneos solo se ve en la base de pecíolo suelta (Figura 3F); en la pinna fértil (Figura 3H), por el envés, la costa solo muestra una cubierta blanquecina fina y adpresa, y las cóstulas son glabras salvo unos pocos pelos en su inserción. En la pinna recolectada de la D. navarrensis de Pueblo Rico, en cambio, la costa está cubierta por el envés de un fieltro denso de pelos pardos, cortos, finos y enmarañados (Figura 6I, J), que siguen por las cóstulas hasta cerca de la mitad de la pínnula. El contraste no es diagnóstico: el ejemplar de D. navarrensis de Amalfi tampoco muestra pelos en las cóstulas, el de D. karsteniana de Belmira sí los tiene en la costa y en la mitad basal de las cóstulas, por el haz los ejes que salen del eje horizontal de la Figura 3G son densamente pubescentes, y en la clave Noben et al. (2018: 846) no usan el indumento de los ejes para separar estas dos especies. Además, lo que se ve en Murringo coincide con la descripción de D. navarrensis: costas y cóstulas con pelos ciliformes, por el haz rojizos y curvados hacia el ápice, y por el envés pardo pálidos a blancos y adpresos a enmarañados (Noben et al., 2018: 852). La planta de Pueblo Rico es más pelosa, pero esa diferencia cabe dentro de la especie. Además, la comparación entre plantas es solo por el envés, de una pinna por planta o ejemplar, de posición desconocida.
A favor de la determinación están, sobre todo, el número de pares de pinnas y la lámina fértil. Por sus proporciones, la de Murringo se parece más al ejemplar de D. navarrensis que al de D. karsteniana. Pero sus soros estaban todos o casi todos cerrados y eran pocos, así que no sé qué tamaño alcanzan ni si llegan a tocarse. En el material de Pueblo Rico, aun los soros abiertos quedan separados entre sí y dejan ver el nervio medio (Figura 6J), como dice la clave para D. navarrensis (Noben et al., 2018: 846); en Murringo, con los soros cerrados, eso todavía no se puede ver. La textura de los pelos de la base del pecíolo (Figura 5E–G) tampoco es fiable en fotos: en un mismo trozo de eje de Pueblo Rico, probablemente la base de un pecíolo, los pelos son rectos y aplicados en mechones paralelos en casi todo el trozo, como la clave describe los de D. karsteniana en ejemplares «que parecen apelmazados», y finos, ondulados y algo enmarañados hacia el extremo cortado (Figura 6F; Noben et al., 2018: 846). El pliego de Abejorral, a 18 km y 2.500 m, tiene una lámina fértil parecida: segmentos foliosos, no contraídos, casi siempre con un solo soro basal, y cocientes parecidos a los de Murringo (diámetro del soro / distancia al nervio medio, 1,0–1,1; longitud del segmento / diámetro del soro, 6,2). Pero sus soros miden 1,6–1,7 mm, por encima del intervalo de D. navarrensis y dentro del de D. karsteniana (Noben et al., 2018: 846, 852), y sus pínnulas, de hasta 11,5 × 2,5 cm, superan las de D. karsteniana (Noben et al., 2018: 847). Esas proporciones, por sí solas, no bastan para acercar una planta a D. navarrensis.
En resumen, a favor de D. navarrensis quedan el número de pares de pinnas y el parecido de la lámina fértil con el ejemplar de Amalfi, y en contra, sobre todo la altitud; ninguno de estos argumentos es decisivo por sí solo.
Comentarios. Hay varias formas de resolverlo. La más directa es buscar yemas en las bases de pecíolo de varias plantas, anotando cuántas se revisan: la planta de Pueblo Rico muestra que en el campo se ven bien (Figura 6B, C). Si aparecieran, apoyarían con fuerza a D. navarrensis; si no aparecen, la duda sigue. Se pueden mirar con lupa los pelos externos de un pecíolo todavía unido a la planta, para ver si son patentes y turgentes o enmarañados; la pared y la estructura catenada de los pelos solo se ven al microscopio, en pelos montados. Se pueden fotografiar con escala los soros abiertos de una pinna del todo fértil, para ver si los segmentos se contraen y los soros se tocan como en el ejemplar de Belmira. Una fronda entera, con su base, permitiría confirmar el número de pares de pinnas y ver si las pinnas basales son pinnatífidas y de costa delgada, como en D. karsteniana, o pinnado-pinnatífidas y de costa fuerte, como en D. navarrensis (Noben et al., 2018: 847, 852). También hay que anotar la posición GPS y la altitud de cada planta examinada. De las plantas de la parte baja del camino, hacia 1.900 m, no se puede suponer que sean de la misma especie que las fotografiadas cerca del mirador, porque a esa altitud caben las dos. Sobre todo, hace falta un ejemplar de respaldo en herbario, que sería, hasta donde sé, el primero de Dicksonia para Sonsón. No encontré ninguno en GBIF, en la base de datos de HUA, en el portal HVAA, cuya búsqueda no es exhaustiva, ni entre los ejemplares que citan Noben et al. (2018).
Hacia el norte, sin encontrar Dicksonia
Al norte de Murringo, en laderas en gran parte boscosas, busqué Dicksonia sin encontrarla en cuatro sitios. El primero es La Honda (El Carmen de Viboral), con búsquedas repetidas entre 1.800 y 2.600 m, una franja que solo coincide en parte con la del camino de Murringo. Los otros tres son la vereda La Víbora, en el camino hacia Santa Rita; parte de la vereda El Cardal, en la Reserva Lusitania; y la parte alta del acueducto de la vereda El Cardal. Los tres primeros están en la Figura 1, en posiciones aproximadas. Solo en La Honda está documentado el esfuerzo de búsqueda; en los otros tres sitios, el resultado indica únicamente que allí no vi el género.
En La Honda, Montoya-López & Lehnert (2024) registraron 11 especies de Cyatheales entre 1.967 y 2.600 m, en búsquedas libres por vías y senderos en marzo de 2024 (sus registros son del 6, 13 y 20 de marzo), sin recolectar especímenes. Esa franja queda dentro de la del camino de Murringo (1.894–2.759 m), pero no la cubre entera. Le faltan 73 m en el extremo inferior, que las búsquedas de diciembre de 2024 y enero de 2025 sí alcanzaron (Montoya-López, 2025: 659), y 159 m en el superior. En el área de muestreo de La Honda el terreno no pasa de unos 2.620 m (modelo Copernicus GLO-30; ESA & Airbus, 2022), así que allí no hay un equivalente del tramo alto del camino, cerca del mirador, donde fotografié el material examinado. La única Dicksoniaceae fue Lophosoria quadripinnata, y no registraron ninguna Dicksonia. El área de muestreo de La Honda está a unos 18 km al norte del camino de Murringo, y las dos zonas drenan hacia el río Samaná Norte, afluente del Nare y del Magdalena (CORNARE, 2016: 15; CORNARE, 2021: 10).
En el mismo camino de Murringo, el 29 de septiembre de 2026, fotografié otros helechos arborescentes (Figura 7). Comparados con los de La Honda (Montoya-López & Lehnert, 2024):
- Cyathea nigripes: en La Honda, a 2.030 m.
- Cyathea planadae: en La Honda, a 2.185 m.
- Cyathea cf. pauciflora: C. pauciflora está en La Honda, a 2.135 m.
- Sphaeropteris cf. quindiuensis: S. quindiuensis es la única Sphaeropteris que Montoya-López & Lehnert (2024) registraron en La Honda, a 2.415 m.
- Alsophila cf. erinacea: A. erinacea es la única Alsophila que Montoya-López & Lehnert (2024) registraron en La Honda, a 1.967–2.030 m; después he fotografiado allí también A. engelii.
- Cyathea sp. A: también la he visto en La Honda, sin identificar; no está entre las 11 especies publicadas.
Cyathea sp. B es la única que no he registrado en La Honda. Los «cf.» indican que las fotos no bastan para confirmar la especie: en Sphaeropteris no se puede descartar S. cuatrecasasii; en Alsophila, ni A. imrayana ni, aunque es menos probable, A. incana; y la Cyathea cf. pauciflora es una identificación tentativa a partir de fotos.
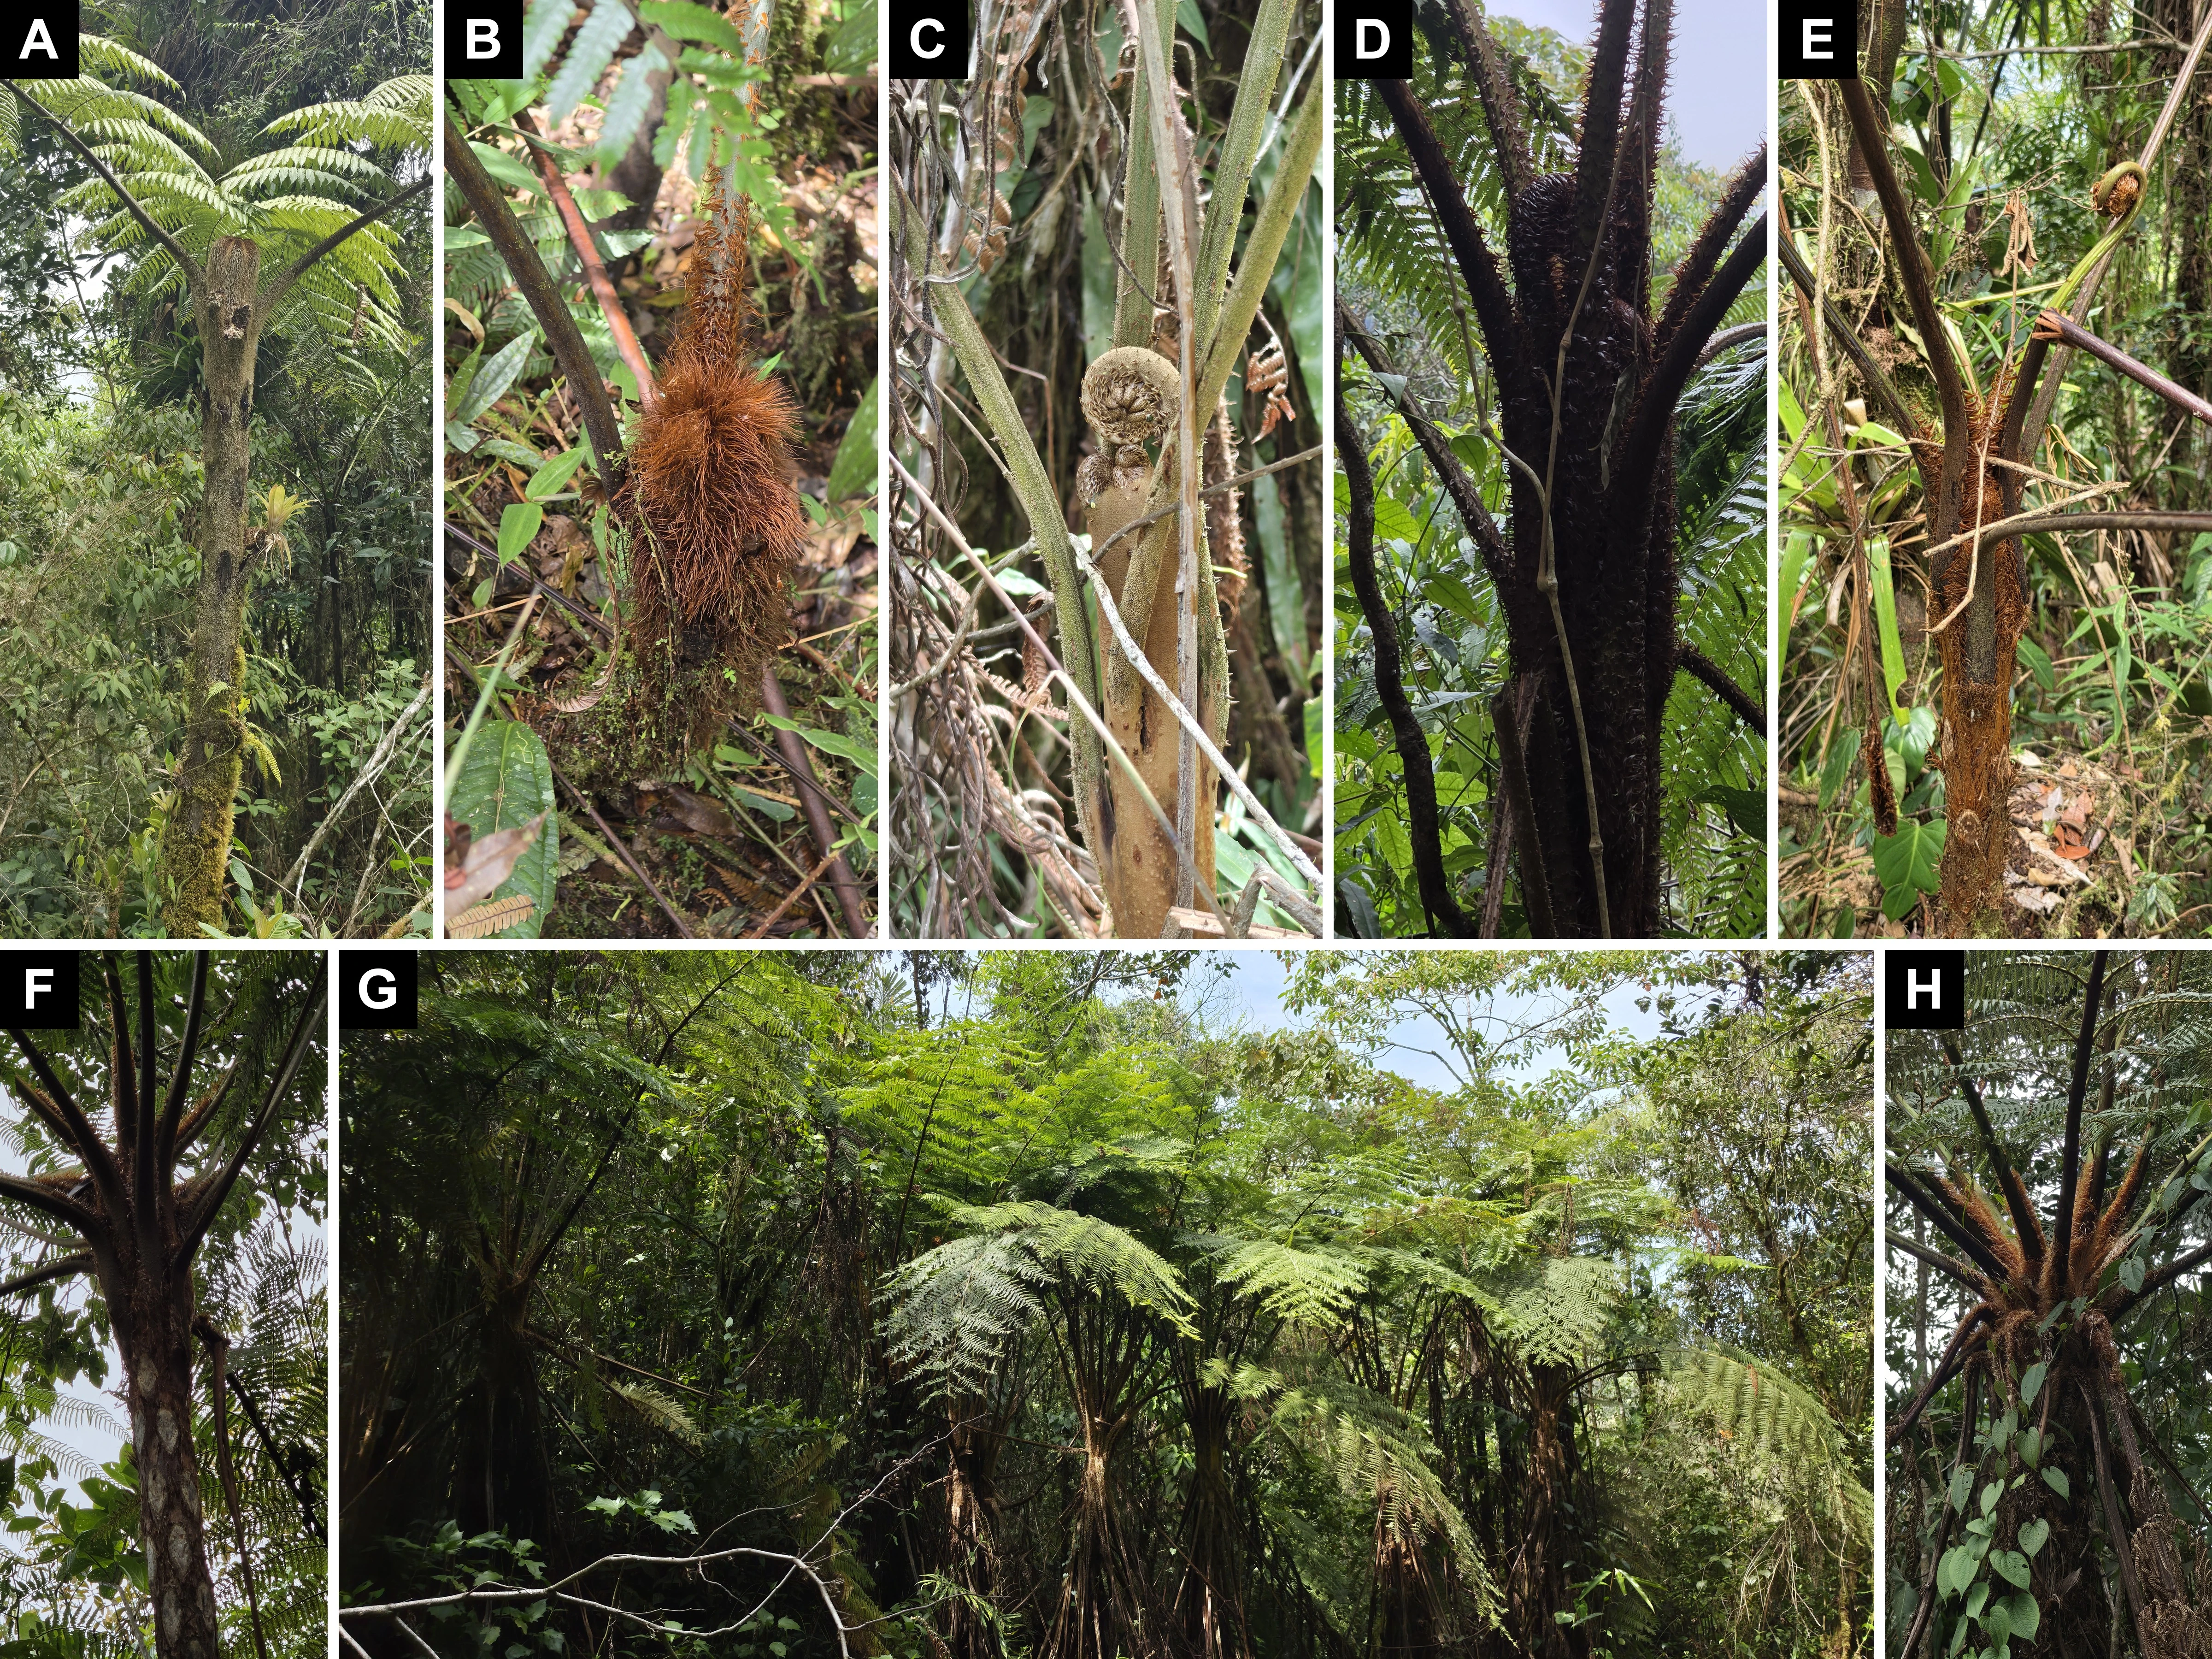
Así, al menos Cyathea nigripes y C. planadae, y probablemente Sphaeropteris quindiuensis y Alsophila erinacea, se encuentran tanto en Murringo como en La Honda, en laderas que en la imagen de satélite se ven en gran parte cubiertas de bosque (Figura 1). Esas especies compartidas y esa cobertura no demuestran que el hábitat sea igual de adecuado para Dicksonia, pero en La Honda no la he encontrado. Caben al menos dos explicaciones.
La primera es de muestreo. Montoya-López & Lehnert (2024) describen su método: búsquedas libres de Cyatheales por vías y senderos, dentro de un área y una franja altitudinal delimitadas (1.967–2.600 m), con georreferenciación y fotografías de las estructuras diagnósticas, sin ejemplares de respaldo. Pero no informan las horas, la distancia recorrida ni el número de observadores, y con ese diseño no se puede estimar la probabilidad de detectar cada especie. Además, las colecciones de helechos arborescentes de HUA y JAUM casi no están en GBIF, y la base de datos del HUA no tiene Dicksonia del oriente de Antioquia (HUA, 2026); el único pliego del oriente que encontré está en JAUM y no aparece en GBIF. Aun así, no creo que Dicksonia haya pasado inadvertida en La Honda. Es un helecho arborescente conspicuo, que en el camino de Murringo vi a lo largo de todo el recorrido, y el inventario de 2024 buscaba precisamente Cyatheales. Tampoco la he encontrado en mis visitas posteriores, entre ellas cuatro jornadas de búsqueda libre por vías y senderos entre 1.800 y 2.300 m, en diciembre de 2024 y enero de 2025, con dos observadores, de 6–8 h y 5–10 km por día (Montoya-López, 2025: 659). Por eso creo más probable que falte en esa franja de La Honda. Sin una estimación de la probabilidad de detectarla, es una hipótesis y no una prueba de ausencia. En la Reserva Natural La Planada (Nariño), en la vertiente del Pacífico, entre 1.850 y 2.300 m y con unos 4.500 mm de lluvia al año, Dicksonia (como «D. sellowiana», de identidad actual incierta) estaba en las diez parcelas de hábitat abierto, repartidas en tres potreros abandonados, y era el 19 % de los helechos arborescentes contados en ellas, incluidas las plántulas; en el bosque secundario y en el primario era cerca del 1 % y solo aparecía en la mitad de las parcelas (Arens & Sánchez Baracaldo, 1998: 61–62, 64, 66, 71). Si aquí se comportara igual, las búsquedas por vías y senderos, que pasan por ambientes abiertos y bordes de bosque, habrían tenido buenas probabilidades de encontrarla, como en el camino de Murringo. Pero un borde de vía no es un potrero abandonado, y plantas aisladas dentro del bosque cerrado sí podrían habérseme escapado.
La segunda es histórica. En el área de La Honda hubo un aprovechamiento importante de sarro, como sustrato y como material de construcción, y un desmonte extenso para potreros. Dicksonia karsteniana es una de las especies que se han usado como sarro (Cárdenas et al., 2019: 183), y la veda de 1977 se dictó por el uso de estos helechos para hacer materas y artesanías y en construcciones rurales (INDERENA, 1977). Para sacar el sarro de Dicksonia se sacrifican plantas adultas cortándoles el sistema de raíces, lo que ha reducido las poblaciones naturales (Ramírez-Valencia et al., 2009: 18–19, citando a Constantino et al., 1999). En la Reserva Forestal Protectora de Río Blanco (Manizales), en un bosque en estado sucesional avanzado, el crecimiento en altura del tallo, medido en nueve plantas, fue de 6,7 cm en 11 meses, y solo estaban fértiles las de más de 4 m (Ramírez-Valencia et al., 2009: 22, 25). Los autores las llaman D. sellowiana, pero un ejemplar de HUA de Manizales, de 2.600 m, georreferenciado a unos 0,6 km del sitio de monitoreo, está determinado como D. karsteniana (D. Sanín 1384, HUA; HUA, 2026). Si ese ritmo fuera general, una planta tardaría décadas en llegar a la talla fértil, de modo que al extraer los adultos se perderían por mucho tiempo las plantas que producen esporas. Es un cálculo mío, con datos de once meses en un solo sitio, y los autores advierten que la tasa de crecimiento puede variar con el estado sucesional (Ramírez-Valencia et al., 2009: 23–24).
A juzgar por La Planada, el desmonte por sí solo no la habría eliminado si quedaban plantas fértiles cerca. Allí, Dicksonia colonizó potreros abandonados que estaban a menos de 500 m de bosque intacto con helechos arborescentes, y los autores suponen que por esa cercanía había esporas disponibles (Arens & Sánchez Baracaldo, 1998: 64, 68, 70). Además, los bosques con 30–40 años de regeneración ya tenían una composición de helechos arborescentes muy parecida a la del bosque primario, dominado por Cyathea planadae (Arens & Sánchez Baracaldo, 1998: 66–67). Si en La Honda pasó algo semejante, que Murringo y La Honda compartan varias Cyatheaceae no excluye que parte del bosque de La Honda haya sido talado. Una explicación posible es que la extracción de sarro, sumada al desmonte, eliminara las plantas adultas de Dicksonia en un área amplia y que, sin fuentes de esporas cercanas, el género no volviera ni a los potreros abandonados ni al bosque regenerado. Así, Dicksonia solo habría sobrevivido alrededor de los páramos de Sonsón (el pliego de Abejorral de 1999 está a unos 11 km del páramo delimitado en 2016) y no en el bosque que hoy se observa continuo hacia el norte, en dirección a La Honda. Es una inferencia mía: ninguno de los dos estudios trata el oriente de Antioquia, las plantas de La Planada pueden ser de otra especie, y queda por explicar por qué esa historia habría eliminado Dicksonia y no las Cyatheaceae que la acompañan.
Murringo, sin embargo, no es el punto documentado más septentrional del género en el oriente de Antioquia. El registro más cercano es el pliego de Abejorral (A. Gil et al. 376, JAUM 67933; HVAA, 2026), a 2.500 m, unos 18 km al noroeste del mirador y unos 11 km más al norte que él, aunque no en dirección a La Honda (Figura 1). Es de 1999, y no sé si la población sigue allí. Si la falta de Dicksonia en La Honda es real, no marca, por tanto, un límite de latitud. El más cercano de los ejemplares que citan Noben et al. (2018) está al sur: D. karsteniana var. karsteniana en el corregimiento de San Félix (Salamina, Caldas), a 2.945 m, unos 38 km al sur-suroeste del mirador según las coordenadas que publican (D. Sanín 3436, HUA, FAUC; Noben et al., 2018: 849). Más lejos están el ejemplar de D. karsteniana var. karsteniana de Envigado, a 2.550 m (F. Giraldo & S. Mejía 1899; Noben et al., 2018: 849), a unos 54 km; el de D. navarrensis de Medellín, Paraje Boquerón, a 2.200 m (J. Hernández et al. 519; Noben et al., 2018: 853), a unos 63 km; y los registros georreferenciados de GBIF en Neira (Caldas) y Jardín (Antioquia), a unos 67 km (GBIF.org, 2026a). En Jardín, Noben et al. (2018: 849) citan D. karsteniana var. karsteniana a 2.560 y 2.870 m.
Conservación
Todas las Dicksonia de Colombia están bajo veda. La Resolución 0801 de 1977 del INDERENA declaró planta protegida el helecho arborescente llamado «helecho macho», «palma boba» o «palma de helecho», de las familias Cyatheaceae y Dicksoniaceae, con Dicksonia entre los géneros nombrados, y estableció una veda permanente en todo el país para su aprovechamiento y comercialización (INDERENA, 1977). La resolución se refería al uso de la raíz para hacer materas y artesanías, sobre todo para exportar, y al del tronco en construcciones rurales.
La veda sigue vigente. La Resolución 0126 de 2024, que fija la lista oficial de especies amenazadas, no deroga las vedas existentes (MADS, 2024: art. 6). CORNARE, la autoridad ambiental de Sonsón, la incluye en el Acuerdo 404 de 2020 entre las vedas que declara de estricto cumplimiento en los órdenes nacional, regional y local (CORNARE, 2020: art. 3). Además, las poblaciones americanas de Dicksonia están en el Apéndice II de CITES, con la anotación #4, en los Apéndices vigentes desde el 5 de marzo de 2026 (Cárdenas et al., 2019: 18; UNEP-WCMC, 2026).
Ninguna de las dos especies candidatas figura como amenazada en Colombia, y ninguna aparece en la Lista Roja global de la UICN, según la copia publicada en GBIF que consulté el 2 de octubre de 2026 (IUCN, 2026). La lista oficial incluye solo D. lehnertiana (EN) y D. stuebelii (CR) (MADS, 2024). El Libro Rojo de los helechos arborescentes evaluó en el ámbito nacional D. karsteniana y D. navarrensis como de Preocupación Menor (Cárdenas et al., 2019: 32, 193). Dicksonia karsteniana es una de las tres especies usadas popularmente como «sarro»; según el libro, las vedas cumplieron su propósito, porque el sarro ya no se ofrece en los mercados populares como antes (Cárdenas et al., 2019: 183).
Como indiqué al describir el camino, el mirador queda dentro del DRMI Páramo de Vida Maitamá–Sonsón y el puente, prácticamente en su límite. El plan de manejo del DRMI no menciona helechos arborescentes (CORNARE, 2021).
Agradecimientos
Agradezco a María Josefita Alcibíades, que guía y encuentra los helechos. Las imágenes de los pliegos JAUM de las Figuras 4 y 5 vienen del portal HVAA (HVAA, 2026). Las fotos de la Figura 6 son de Jonatan Castro Hernández y se reproducen, recortadas y montadas, con su licencia CC BY (Castro Hernández, 2022).
Referencias
Alzate FA, Sarrazola H, 2025. Estudios bióticos: Plantas, edafofauna epígea, anfibios y aves de los Complejos de Páramos de Sonsón y Urrao. Version 1.1. Instituto de Investigación de Recursos Biológicos Alexander von Humboldt. Occurrence dataset. https://doi.org/10.15472/wiu5hg
Arens NC, Sánchez Baracaldo P, 1998. Distribution of tree ferns (Cyatheaceae) across the successional mosaic in an Andean cloud forest, Nariño, Colombia. American Fern Journal 88 (2): 60–71. https://doi.org/10.2307/1547225
Arroyave Arrubla SI, 2017. Formación experiencial de paisajes campesinos. Río Verde de los Montes, Antioquia, Colombia. 1950-2016. Tesis de Maestría en Geografía Humana. El Colegio de Michoacán, Centro de Estudios en Geografía Humana, La Piedad, Michoacán, México.
Cárdenas D, Rodríguez W, García N, Sua S, Lehnert M, Giraldo F, 2019. Libro rojo de plantas de Colombia. Volumen 7: Helechos arborescentes. Serie Libros Rojos de Especies Amenazadas de Colombia. Instituto Amazónico de Investigaciones Científicas SINCHI, Ministerio de Ambiente y Desarrollo Sostenible, Bogotá.
Castro Hernández J, 2022. Dicksonia navarrensis, Pueblo Rico, Risaralda, Colombia, 5 de febrero de 2022. iNaturalist, observación 339463561. https://www.inaturalist.org/observations/339463561 (consultado el 1 de octubre de 2026).
CORNARE [Corporación Autónoma Regional de las Cuencas de los Ríos Negro y Nare], 2016. Reserva Forestal Protectora Regional de los Cañones de los Ríos Melcocho y Santo Domingo: plan de manejo. Convenio Marco 112-2015, Nature and Culture International–CORNARE. CORNARE, El Santuario, Antioquia. https://www.cornare.gov.co/SIAR/Plan-de-manejo/plan-de-manejo-melcocho-santo-domingo/Plan-de-Manejo-de-los-Canones-de-los-rios-Melcocho-y-Santo-Domingo.pdf
CORNARE [Corporación Autónoma Regional de las Cuencas de los Ríos Negro y Nare], 2019. Acuerdo 388 del 6 de junio de 2019, por medio del cual se declara, delimita y alindera, el Distrito Regional de Manejo Integrado Páramo de Vida Maitamá–Sonsón y se dictan otras disposiciones. El Santuario, Antioquia. https://www.cornare.gov.co/Acuerdos/Acuerdo_388_de_2019_cornare.PDF
CORNARE [Corporación Autónoma Regional de las Cuencas de los Ríos Negro y Nare], 2020. Acuerdo 404 del 29 de mayo de 2020, por el cual se declara la veda para algunas especies de flora silvestre, en la jurisdicción de CORNARE y se toman otras determinaciones. El Santuario, Antioquia. https://www.cornare.gov.co/Acuerdos/Acuerdo_404_2020_cornare.pdf
CORNARE [Corporación Autónoma Regional de las Cuencas de los Ríos Negro y Nare], 2021. Plan de Manejo del Distrito Regional de Manejo Integrado Páramo de Vida Maitamá–Sonsón. CORNARE, El Santuario, Antioquia. https://www.cornare.gov.co/SIAR/Plan-de-manejo/DRMI-Paramo-de-Vida-Maitama-Sonson/Plan-de-Manejo-DRMI-Paramo-de-Vida-Maitama-Sonson.pdf
ESA [European Space Agency], Airbus, 2022. Copernicus DEM. Instancia GLO-30 (COP-DEM_GLO-30-DGED). European Space Agency. https://doi.org/10.5270/ESA-c5d3d65. Distribuido por Microsoft Planetary Computer, colección cop-dem-glo-30. https://planetarycomputer.microsoft.com/dataset/cop-dem-glo-30 (consultado el 30 de septiembre de 2026).
García Morera Y, Bedoya A, Posada E, Atehortua A, 2018. Inventario de Flora de la Reserva Forestal Protectora Regional Cuchillas del Tigre, El Calón y La Osa. Municipios de San Francisco y Sonsón-Antioquia. Version 1.0. Corporación Autónoma Regional de las Cuencas de los Ríos Negro y Nare (CORNARE). Sampling event dataset. https://doi.org/10.15472/pkjb1p (consultado el 30 de septiembre de 2026).
GBIF.org, 2026a. Búsqueda de registros de Dicksoniaceae en Colombia. https://www.gbif.org/occurrence/search?taxon_key=6622&country=CO (consultado el 30 de septiembre de 2026).
HUA [Herbario Universidad de Antioquia], 2026. Consulta de ejemplares, género Dicksonia. Universidad de Antioquia, Medellín. http://www2.udea.edu.co/herbario/paginas/consultas/consultarEjemplares.iface (exportación del 1 de octubre de 2026: 147 registros de 59 colecciones, contadas por colector y número de campo).
HVAA, 2026. Imágenes de los pliegos JAUM 034577 y 034578 (F. Giraldo & S. Mejía 1907), JAUM 035210 y 035212 (F. Giraldo & S. Mejía 2035) y JAUM 67933 (A. Gil et al. 376), Jardín Botánico de Medellín Joaquín Antonio Uribe; búsqueda «Dicksonia, Colombia», 219 registros. HVAA Portal, herbariovaa.org (consultado el 1 y el 2 de octubre de 2026).
iNaturalist, 2026. Observaciones de Dicksonia (taxón 125929) y Dicksoniaceae (taxón 64674) en el oriente de Antioquia, consultadas con la API de iNaturalist (https://api.inaturalist.org/v1/observations) en el rectángulo 5,3–6,6° N, 74,5–75,75° W y asignadas a municipios con los límites de geoBoundaries; en Sonsón, observaciones 319578300, 338031863, 338508364, 339784541 y 343521376 (consultado el 2 de octubre de 2026).
INDERENA [Instituto Nacional de los Recursos Naturales Renovables y del Ambiente], 1977. Resolución 0801 del 24 de junio de 1977, por la cual se declara planta protegida una especie de flora silvestre y se establece una veda. https://faolex.fao.org/docs/pdf/col29080.pdf
IUCN [International Union for Conservation of Nature], 2026. The IUCN Red List of Threatened Species. Conjunto de datos de lista de verificación publicado en GBIF. https://doi.org/10.15468/0qnb58 (consultado mediante GBIF.org el 2 de octubre de 2026).
Jiménez Gómez AF, 2017. Criando la montaña, el agua y la vida: procesos hidrocomunitarios campesinos y acumulación por despojo hídrico en el Complejo de Páramos de Sonsón en Antioquia. Tesis de Maestría en Gestión Sustentable del Agua. El Colegio de San Luis, San Luis Potosí, México.
MADS [Ministerio de Ambiente y Desarrollo Sostenible], 2016. Resolución 0493 del 22 de marzo de 2016, por medio de la cual se delimita el Páramo Sonsón y se adoptan otras determinaciones. Bogotá. Capa de páramos delimitados, escala 1:25.000, Minambiente: https://geo.minambiente.gov.co/server/rest/services/Ecosistemas_estrategicos_figuras_distincion/MapServer/2 (consultado el 28 de septiembre de 2026).
MADS [Ministerio de Ambiente y Desarrollo Sostenible], 2024. Resolución 0126 del 6 de febrero de 2024, por la cual se establece el listado oficial de las especies silvestres amenazadas de la diversidad biológica colombiana continental y marino costera, se actualiza el Comité Coordinador de Categorización de las Especies Silvestres Amenazadas en el territorio nacional y se dictan otras disposiciones. Bogotá.
Montoya-López A, 2025. Hidden in the Andes: new insights into the distribution of Magnolia guatapensis (Lozano) Govaerts (Magnoliaceae) and Cyathea antioquensis A. Rojas (Cyatheaceae). Check List 21 (4): 658–665. https://doi.org/10.15560/21.4.658
Montoya-López A, Lehnert M, 2024. Species richness of Cyatheales in the upper Santo Domingo Canyon, Antioquia, Colombia. Check List 20 (5): 1182–1191. https://doi.org/10.15560/20.5.1182
Noben S, Kessler M, Weigand A, Tejedor A, Rodríguez Duque WD, Giraldo Gallego LF, Lehnert M, 2018. A taxonomic and biogeographic reappraisal of the genus Dicksonia (Dicksoniaceae) in the Neotropics. Systematic Botany 43 (4): 839–857. https://doi.org/10.1600/036364418X697634
PNNC [Parques Nacionales Naturales de Colombia], 2026. Registro Único Nacional de Áreas Protegidas (RUNAP): Distrito Regional de Manejo Integrado Páramo de Vida Maitamá - Sonsón, área 1513 (polígono a escala 1:25.000 aportado por CORNARE). https://runap.parquesnacionales.gov.co/area-protegida/1513 (consultado el 2 de octubre de 2026).
Pteridoportal, 2026. Ejemplar BRIT1135268 (hojas 2 y 3: BRIT1135269 y BRIT1135270), J. Castro-Hernández et al. 1819, Dicksonia navarrensis, Pueblo Rico, Risaralda, Colombia. https://pteridoportal.org/portal/collections/individual/index.php?occid=5573553 (consultado el 1 de octubre de 2026).
Ramírez-Valencia V, Sanín D, Álvarez-Mejía LM, 2009. Estimación del crecimiento de Dicksonia sellowiana Hook., (Dicksoniaceae Hook.), en la Reserva Forestal Protectora de Río Blanco, Manizales, Caldas, y registros colombianos de su fertilidad. Boletín Científico. Centro de Museos. Museo de Historia Natural 13 (1): 17–29. http://www.scielo.org.co/scielo.php?pid=S0123-30682009000100002&script=sci_arttext
UNEP-WCMC, 2026. Species+: Dicksonia spp., inclusión en los Apéndices de CITES (taxon concept 13237; Apéndices vigentes desde el 5 de marzo de 2026). https://speciesplus.net/species#/taxon_concepts/13237/legal (consultado el 30 de septiembre y el 2 de octubre de 2026).